Pseudotomentella tristis (P. Karst.) M.J. Larsen 1972
= Polyozellus tristis
kutnerka ...
Uwagi
Badany okaz oznaczono jako Pseudotomentella tristis s.l. Rewizja grupy P. tristis wykazała znaczne rozdrobnienie wcześniejszego, szeroko ujmowanego taksonu na kilka odrębnych linii gatunkowych. W przypadku badanego materiału zestaw cech mikroskopowych wyraźnie wskazuje na przynależność do tego zespołu, jednak poszczególne cechy wykazują częściowe nakładanie się zakresów pomiędzy gatunkami.
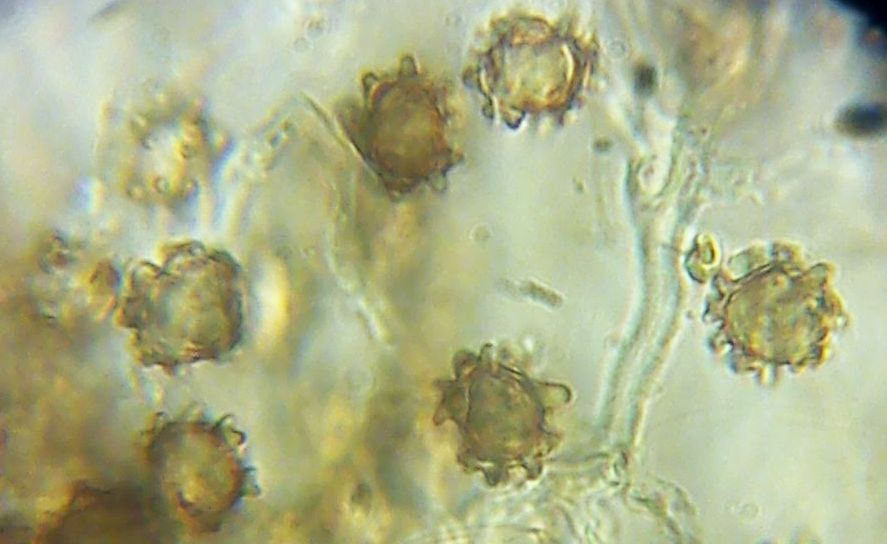
Szczególnie charakterystyczne są echinulate zarodniki, których ornamentacja jest przeważnie pojedyncza, ale częściowo dwu- lub trójdzielna, oraz wyraźna zielona reakcja w KOH obejmująca zarodniki i inkrustację. Szerokość dolnych strzępek subiculum jest stosunkowo duża i wynosi średnio około 4,8 µm.
Podjęto próbę rozdzielenia materiału od blisko spokrewnionych gatunków grupy P. tristis, jednak zgodność poszczególnych cech nie jest wystarczająca do wiarygodnego oznaczenia gatunkowego. Dlatego, przy braku danych molekularnych, najbezpieczniejsze pozostaje oznaczenie Pseudotomentella tristis s.l.
Oznaczenie końcowe: Pseudotomentella tristis s.l.
Tabela porównawcza cech badanego okazu z cechami grupy Pseudotomentella tristis s.l. według literatury.
| Cecha | Pseudotomentella tristis s.l. (badany okaz) | Pseudotomentella tristis s.l. / grupa P. tristis (literatura) | Status zgodności |
|---|---|---|---|
| Podłoże | Owocnik rozpostarty na drewnie; materiał ciągły, bez widocznych domieszek innych gatunków. | Gatunki grupy P. tristis tworzą rozpostarte, kortycjoidalne owocniki; mogą występować na drewnie, glebie, korzeniach i innych podłożach, zależnie od gatunku. [1] | ZGODNE |
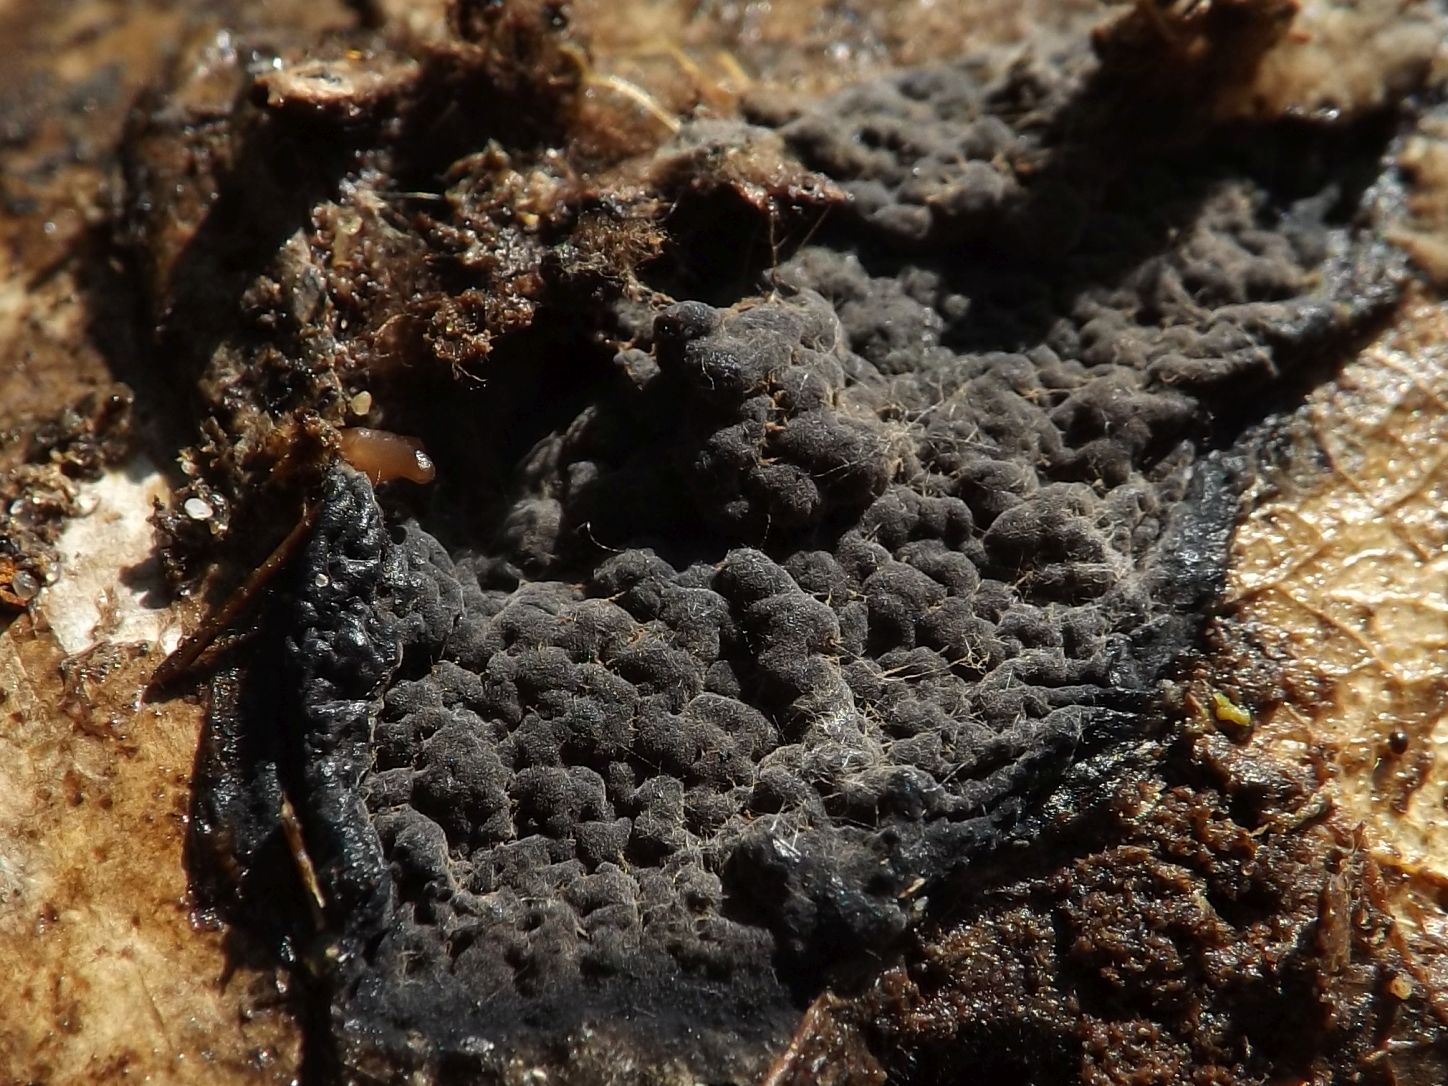
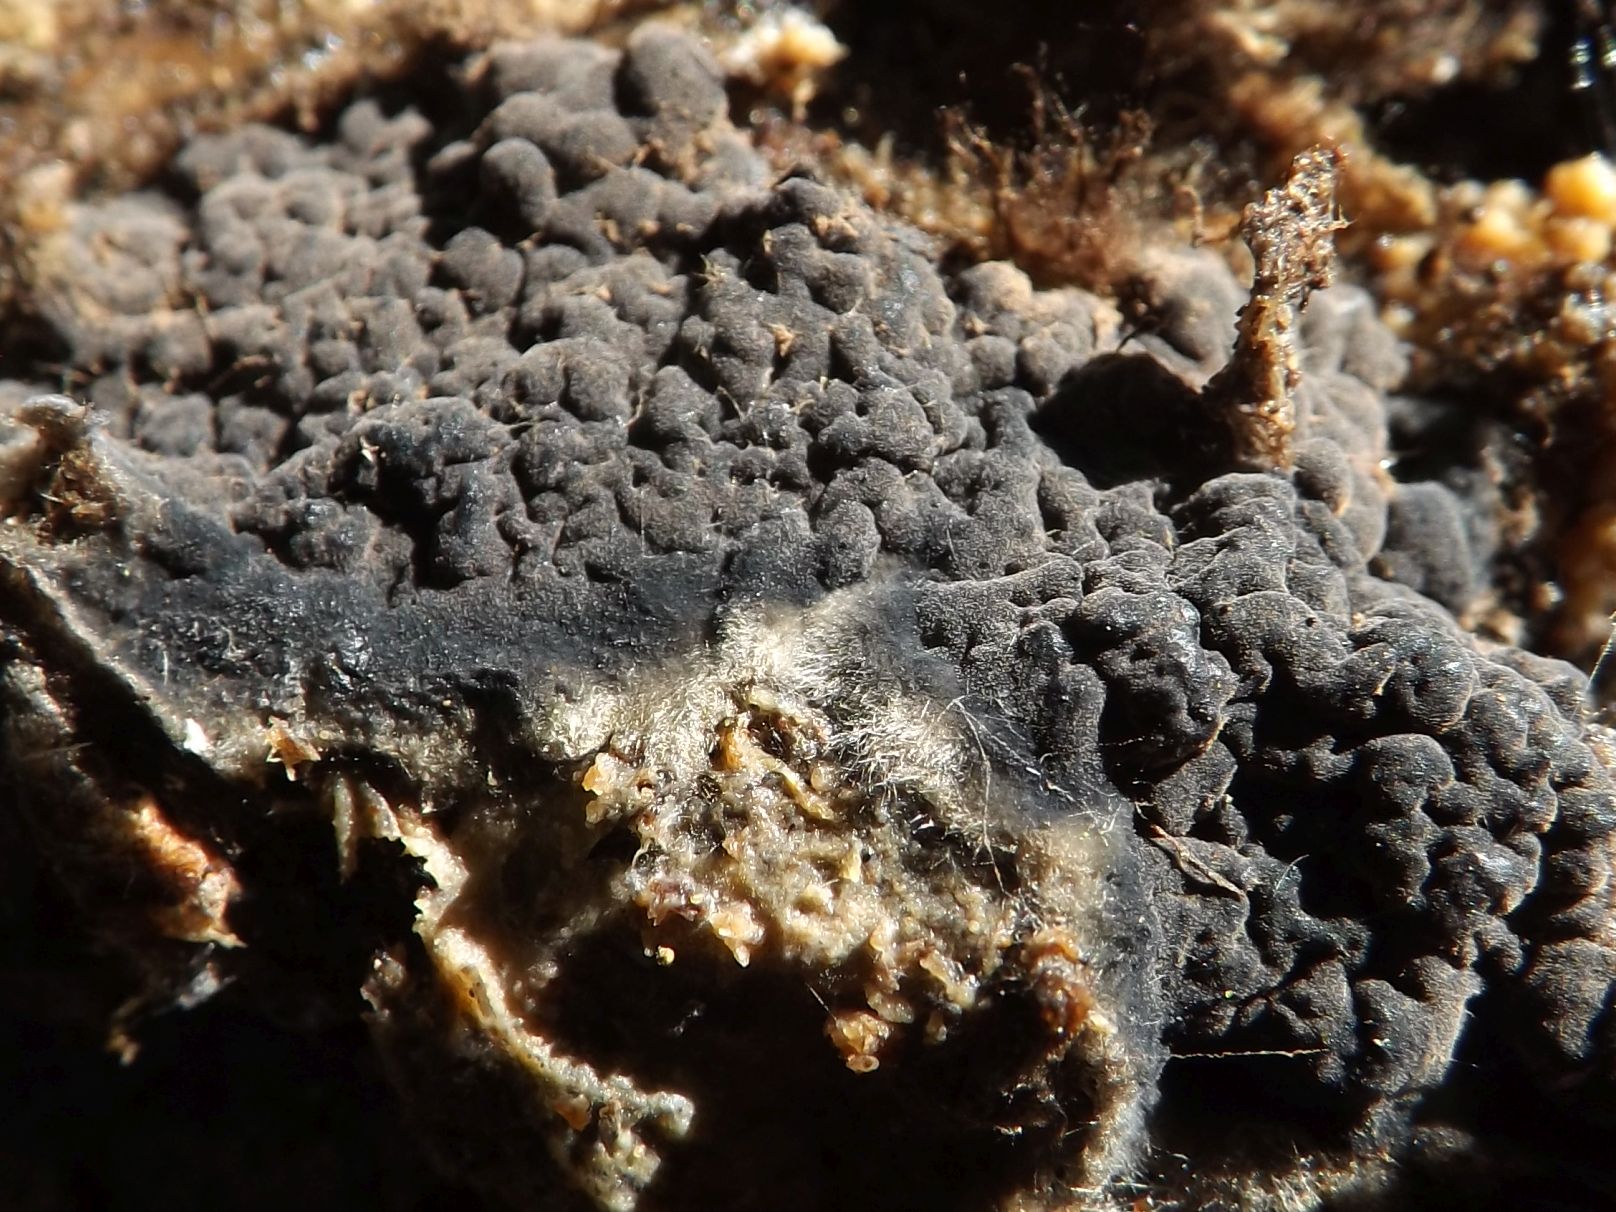
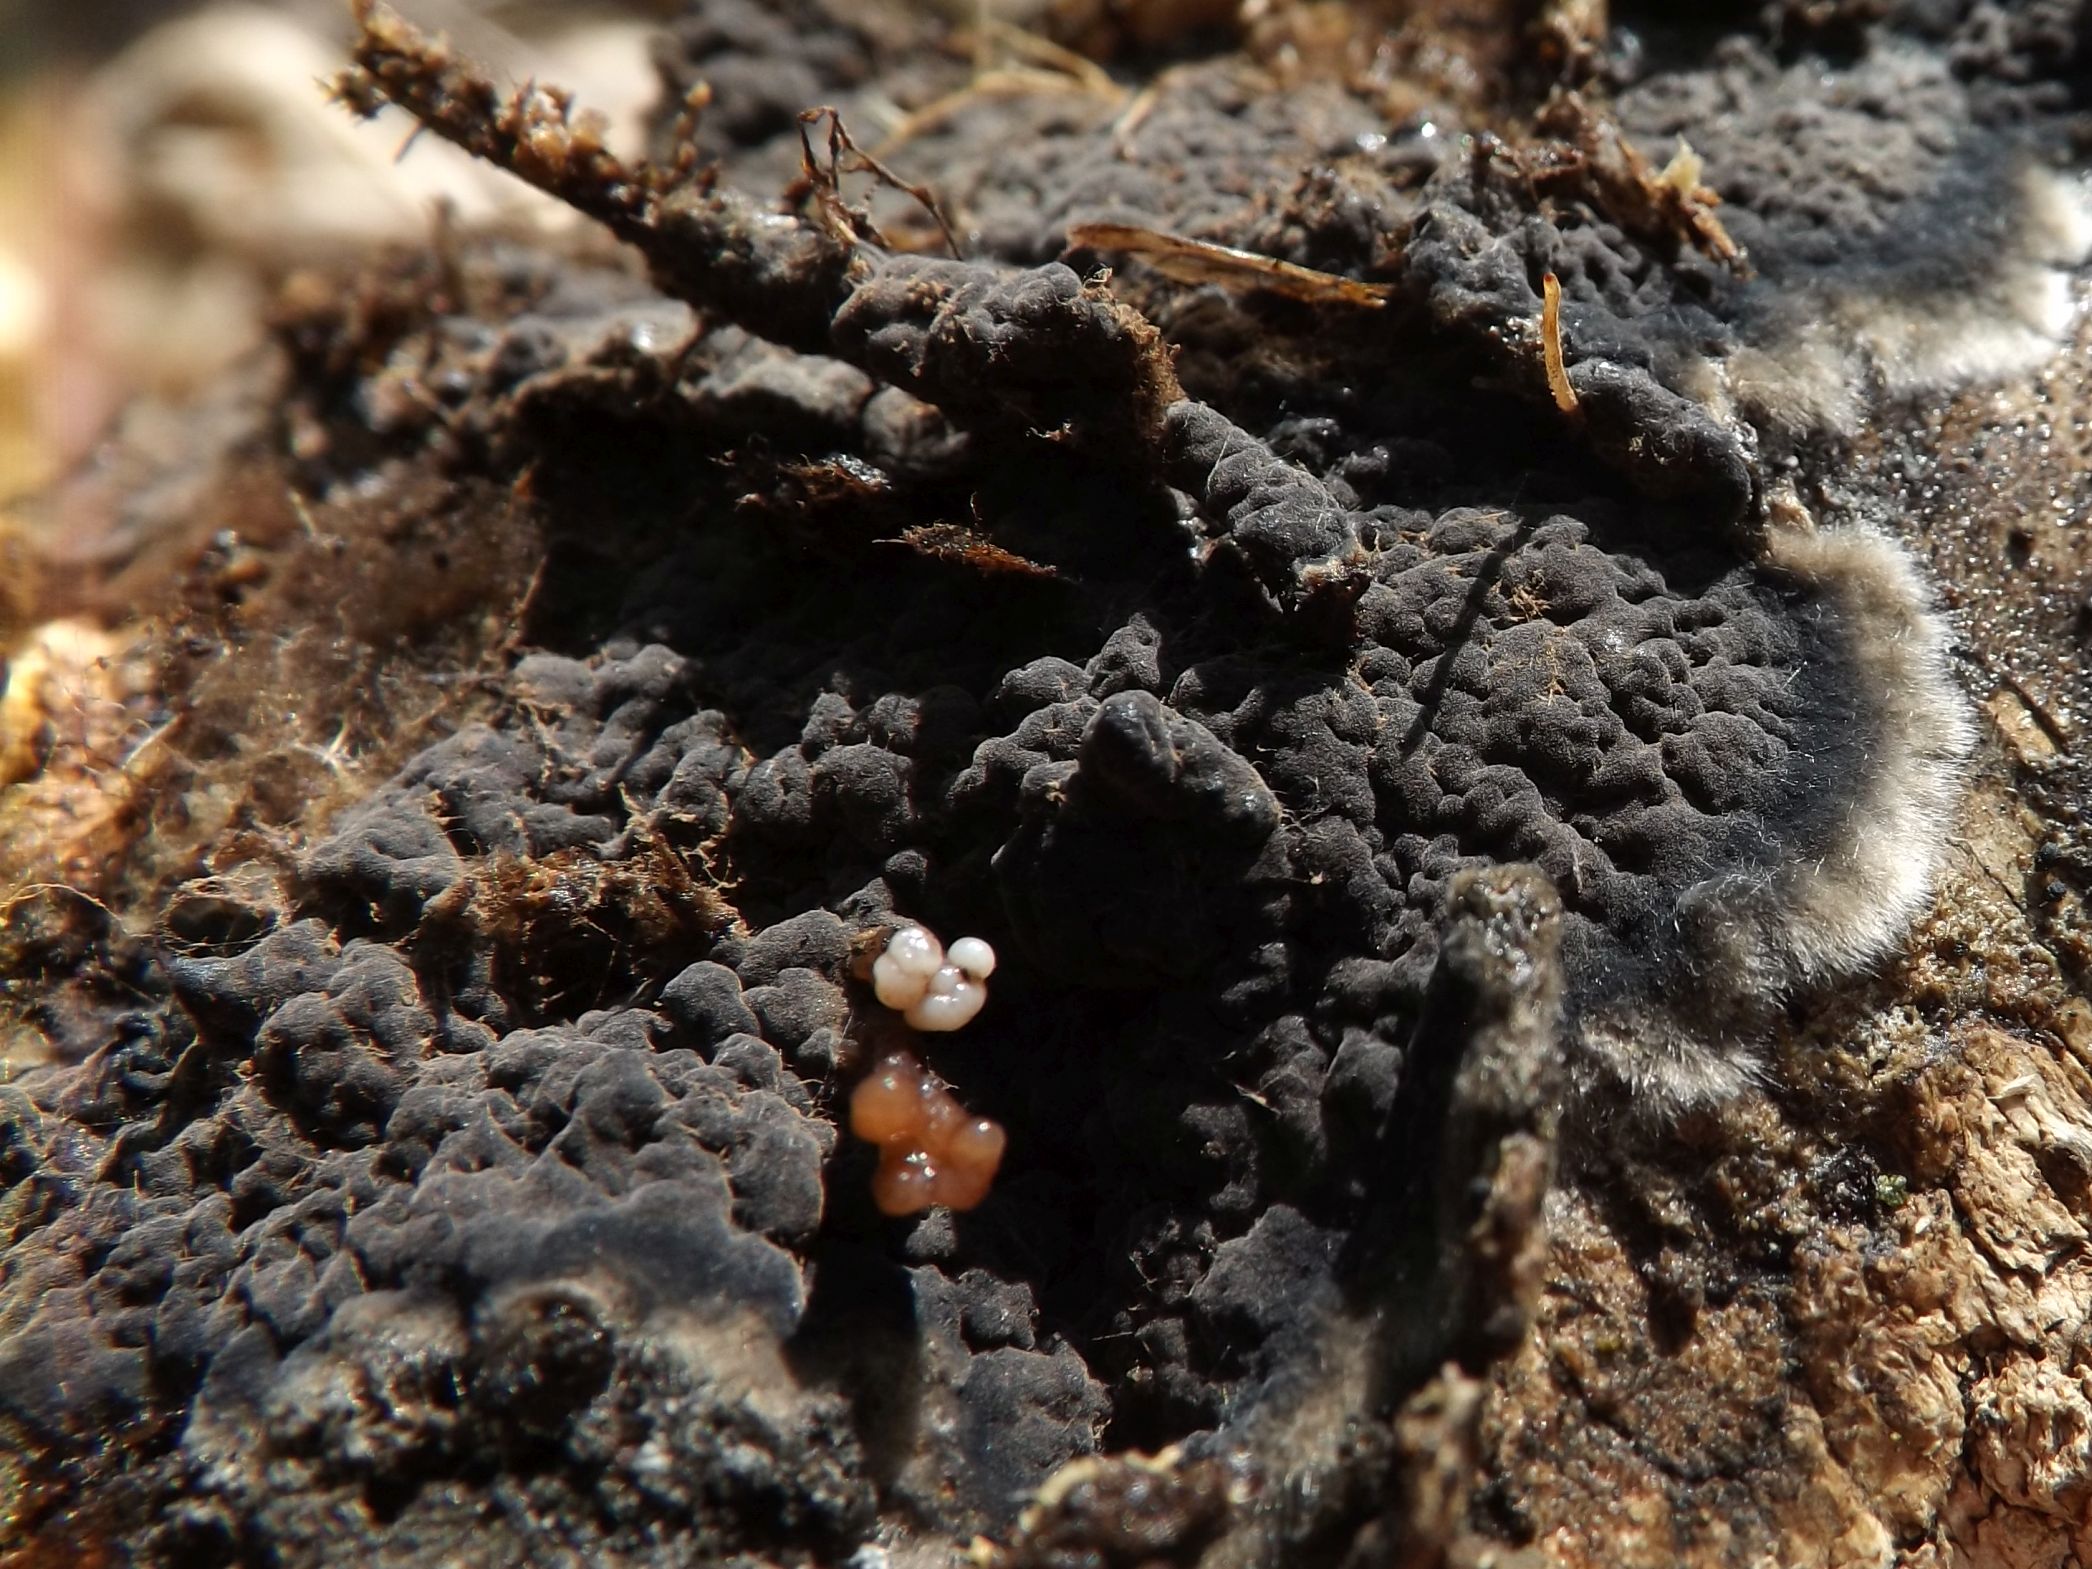
| Owocnik | Bardzo ciemnobrązowy do prawie czarnego; powierzchnia wyraźnie brodawkowata. Po przetarciu lub dotknięciu powierzchnia staje się wyraźnie czarna; przed dotknięciem widoczne jest brązowe oszronienie. | Owocniki grupy P. tristis są rozpostarte, błoniaste, zwykle ciągłe w dojrzałych częściach; barwa obejmuje odcienie brązowe, szarobrązowe, purpurowobrązowe i niekiedy niebieskoszare. Powierzchnia może być gładka lub silnie pofalowana, zależnie od gatunku. [1] | ZGODNE |
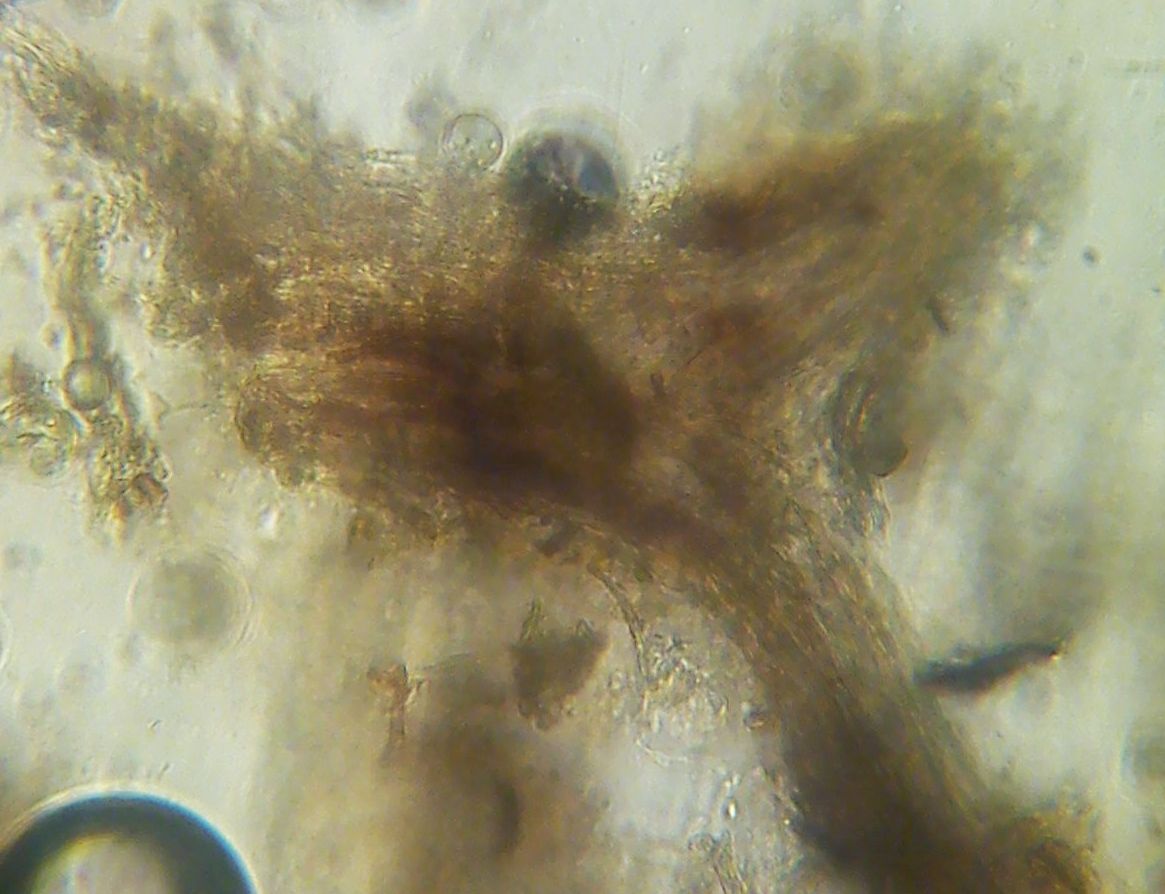
| Ryzomorfy | Nie stwierdzono? W jednej z badanych próbek stwierdzono obecność struktury budową nieco przypominającą ryzomorfę ale bez pewności jej pochodzenia. | Brak ryzomorfów jest typowy dla większości morfologicznie rozpoznawanych gatunków grupy; obecność wyraźnych struktur ryzomorficznych jest cechą diagnostyczną niektórych odrębnych linii. [1] | ZGODNE |
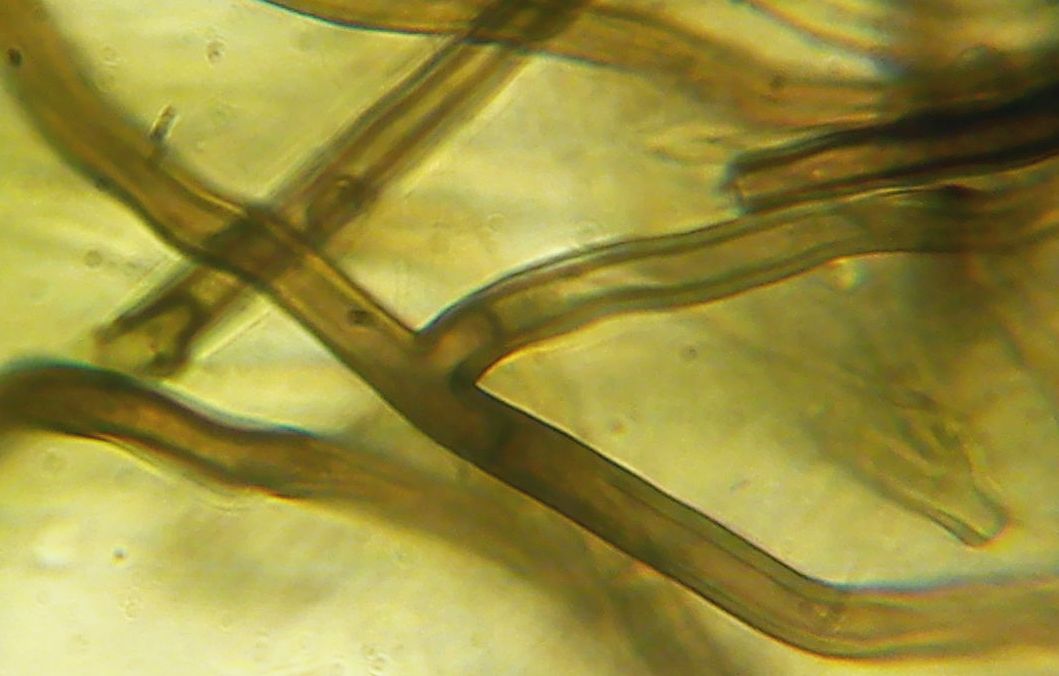
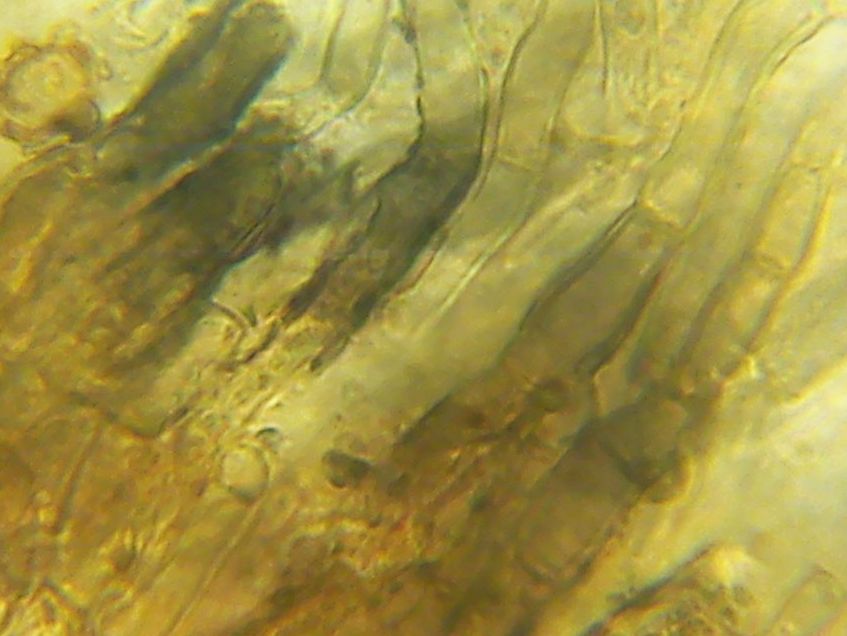
| System strzępkowy | Monomityczny; dolne subiculum zbudowane z ciemnobrązowych, grubościennych strzępek, ku górze przechodzących w jaśniejsze i cieńsze; w kierunku subhymenium strzępki prawie hialinowe. | Gatunki grupy P. tristis mają zasadniczo monomityczną budowę owocnika; subiculum jest dobrze rozwinięte, a jego budowa i szerokość strzępek należą do ważnych cech różnicujących gatunki grupy. [1] | ZGODNE |
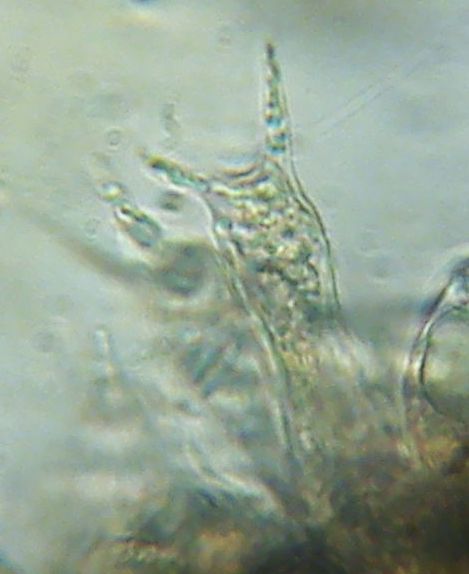
| Strzępki subiculum | (4,4) 4,5–5,1 (5,3) µm, N = 11; Me = 4,8 µm. W szerszej serii: (3,9) 4,1–5,3 (6,1) µm, N = 21; Me = 4,7 µm. Pomiar wykonany z dolnej, ciemnobrązowej części subiculum, z pominięciem cienkich strzępek subhymenium. | Szerokość strzępek subiculum jest jedną z ważniejszych cech rozdzielających gatunki grupy P. tristis; poszczególne gatunki wykazują częściowo nakładające się zakresy. [1] | CZĘŚCIOWO ZGODNE |
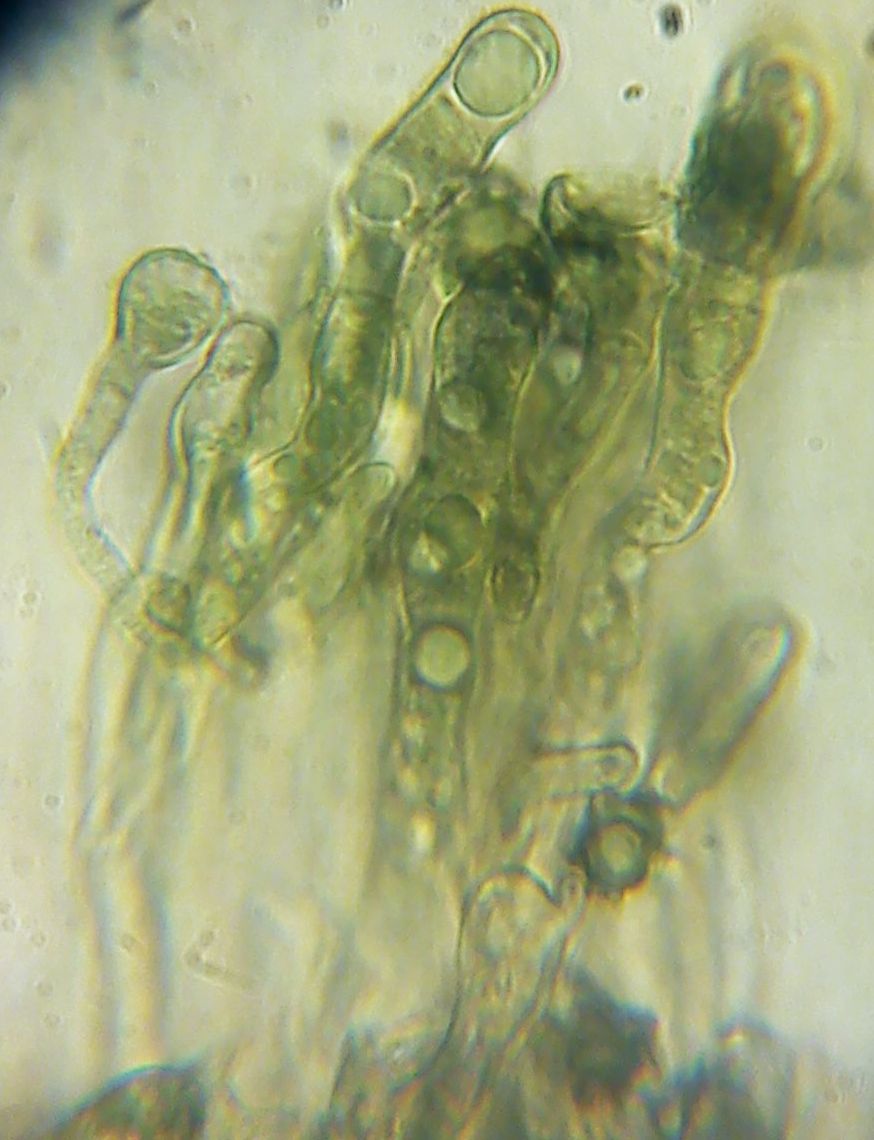
| Inkrustacja | Wyraźna, obfita i ciemna; rozpoczyna się na strzępkach pod podstawkami i zwykle sięga do około połowy długości podstawki. W górnej części podstawek rzadsza. | Inkrustacja strzępek i jej charakter są wykorzystywane w diagnostyce gatunków grupy P. tristis; szczegóły rozmieszczenia i reakcji inkrustacji różnią się między gatunkami. [1] | ZGODNE |
| Podstawki | (37) 37,9–62,1 (74,9) × (7,7) 7,8–9,5 (10,9) µm; N = 8; Me = 53,1 × 9,0 µm; Qe = 5,9. Najczęściej o wąskiej podstawie i rozszerzające się ku górze; sporadycznie cylindryczne, zwężone w części środkowej. | Podstawki grupy P. tristis są maczugowate do cylindrycznych; ich wymiary częściowo nakładają się pomiędzy gatunkami i mają mniejsze znaczenie diagnostyczne niż cechy zarodników i subiculum. [1] | ZGODNE |
| Sterygmy | (5,7) 8,5–10,4 (11,3) µm; N = 6; Me = 9,2 µm. | Długość sterygm jest zmienna pomiędzy gatunkami grupy P. tristis; mieści się zasadniczo w zakresie około kilku do kilkunastu mikrometrów. [1] | ZGODNE |
| Zarodniki – widok frontalny | (7,8) 7,9–9,5 (10,0) × (7,2) 7,4–8,3 (8,7) µm; N = 14; Me = 8,6 × 7,8 µm; Qe = 1,1. | Zarodniki gatunków grupy P. tristis są echinulate, często z ornamentacją bi- lub trifurkatną; zakresy wymiarów różnią się pomiędzy poszczególnymi gatunkami i częściowo się nakładają. [1] | ZGODNE |
| Zarodniki – widok boczny | (7,6) 7,9–9,1 (9,2) × (5,3) 5,5–7,1 (7,2) µm; N = 12; Me = 8,5 × 6,3 µm; Qe = 1,4. | Rozróżnienie widoku frontalnego i bocznego jest istotne w diagnostyce grupy; poszczególne gatunki różnią się szczególnie szerokością zarodników widzianych z boku. [1] | ZGODNE |
| Ornamentacja zarodników | Większość echinuli pojedyncza; część dwudzielna, sporadycznie bardziej rozgałęziona. Część zarodników posiada jedynie szerokie, tępe wybrzuszenia ściany, bez wyraźnie wykształconego kolca. Dobrze rozwinięte echinule: 1,0–1,6 µm; N = 11; Me = 1,3 µm. W bardziej restrykcyjnej serii: 0,9–1,6 µm; N = 16; Me = 1,1 µm. | Zarodniki grupy P. tristis są charakterystycznie echinulate; ornamentacja może być pojedyncza, dwu- lub trójdzielna. Długość echinuli jest jedną z cech pomocnych w rozdzielaniu blisko spokrewnionych gatunków. [1] | ZGODNE |
| KOH | Wyraźna reakcja zielona. Zielone zabarwienie obejmuje również zarodniki; inkrustacja przybiera intensywnie zieloną barwę. | Reakcje w KOH, w tym pojawianie się barw zielonych lub niebieskozielonych, są cechą wykorzystywaną w rozróżnianiu części gatunków grupy P. tristis. [1] | ZGODNE |
| IKI / Ługol | Nie zaobserwowano reakcji. | Brak wyraźnej reakcji amyloidowej w standardowej próbie IKI nie wyklucza przynależności do grupy; znaczenie reakcji zależy również od badanej struktury. [1] | BRAK DANYCH ROZSTRZYGAJĄCYCH |
| Cystydia | Nie stwierdzono. | Gatunki rodzaju Pseudotomentella charakteryzują się brakiem cystyd. [1] | ZGODNE |
| Uwagi taksonomiczne | Okaz wykazuje cechy dobrze odpowiadające grupie P. tristis s.l., jednak zestaw cech nie pozwala z dostateczną pewnością przypisać go do jednego z obecnie rozróżnianych gatunków. Szczególnie istotne są: szerokość strzępek subiculum około 4,8 µm, wymiary zarodników w widoku frontalnym i bocznym oraz zmienna długość echinuli. | Rewizja Svantessona i in. (2019) wykazała, że pod nazwą P. tristis s.l. kryło się wiele odrębnych linii. Autorzy przeanalizowali typy oraz 147 kolekcji i przedstawili klucz do rozdzielenia gatunków grupy. Część cech morfologicznych nakłada się pomiędzy gatunkami, dlatego pewne oznaczenie bez danych molekularnych może być niemożliwe. [1] | ZGODNE Z GRUPĄ |
Literatura
- Svantesson, S., Larsson, K.-H., Kõljalg, U., May, T.W., Cangren, P., Nilsson, R.H. & Larsson, E. 2019. Solving the taxonomic identity of Pseudotomentella tristis s.l. (Thelephorales, Basidiomycota) – a multi-gene phylogeny and taxonomic review, integrating ecological and geographical data. MycoKeys 50: 1–77. DOI: 10.3897/mycokeys.50.32432.
Galeria zdjęć
Lokalizacja: Puszcza Knyszyńska, Ostrów Południowy, 1.3 km S.
Siedlisko: Las liściasty.
Substrat: Owocniki na dolnej stronie pnia brzozy leżącego na ziemi.