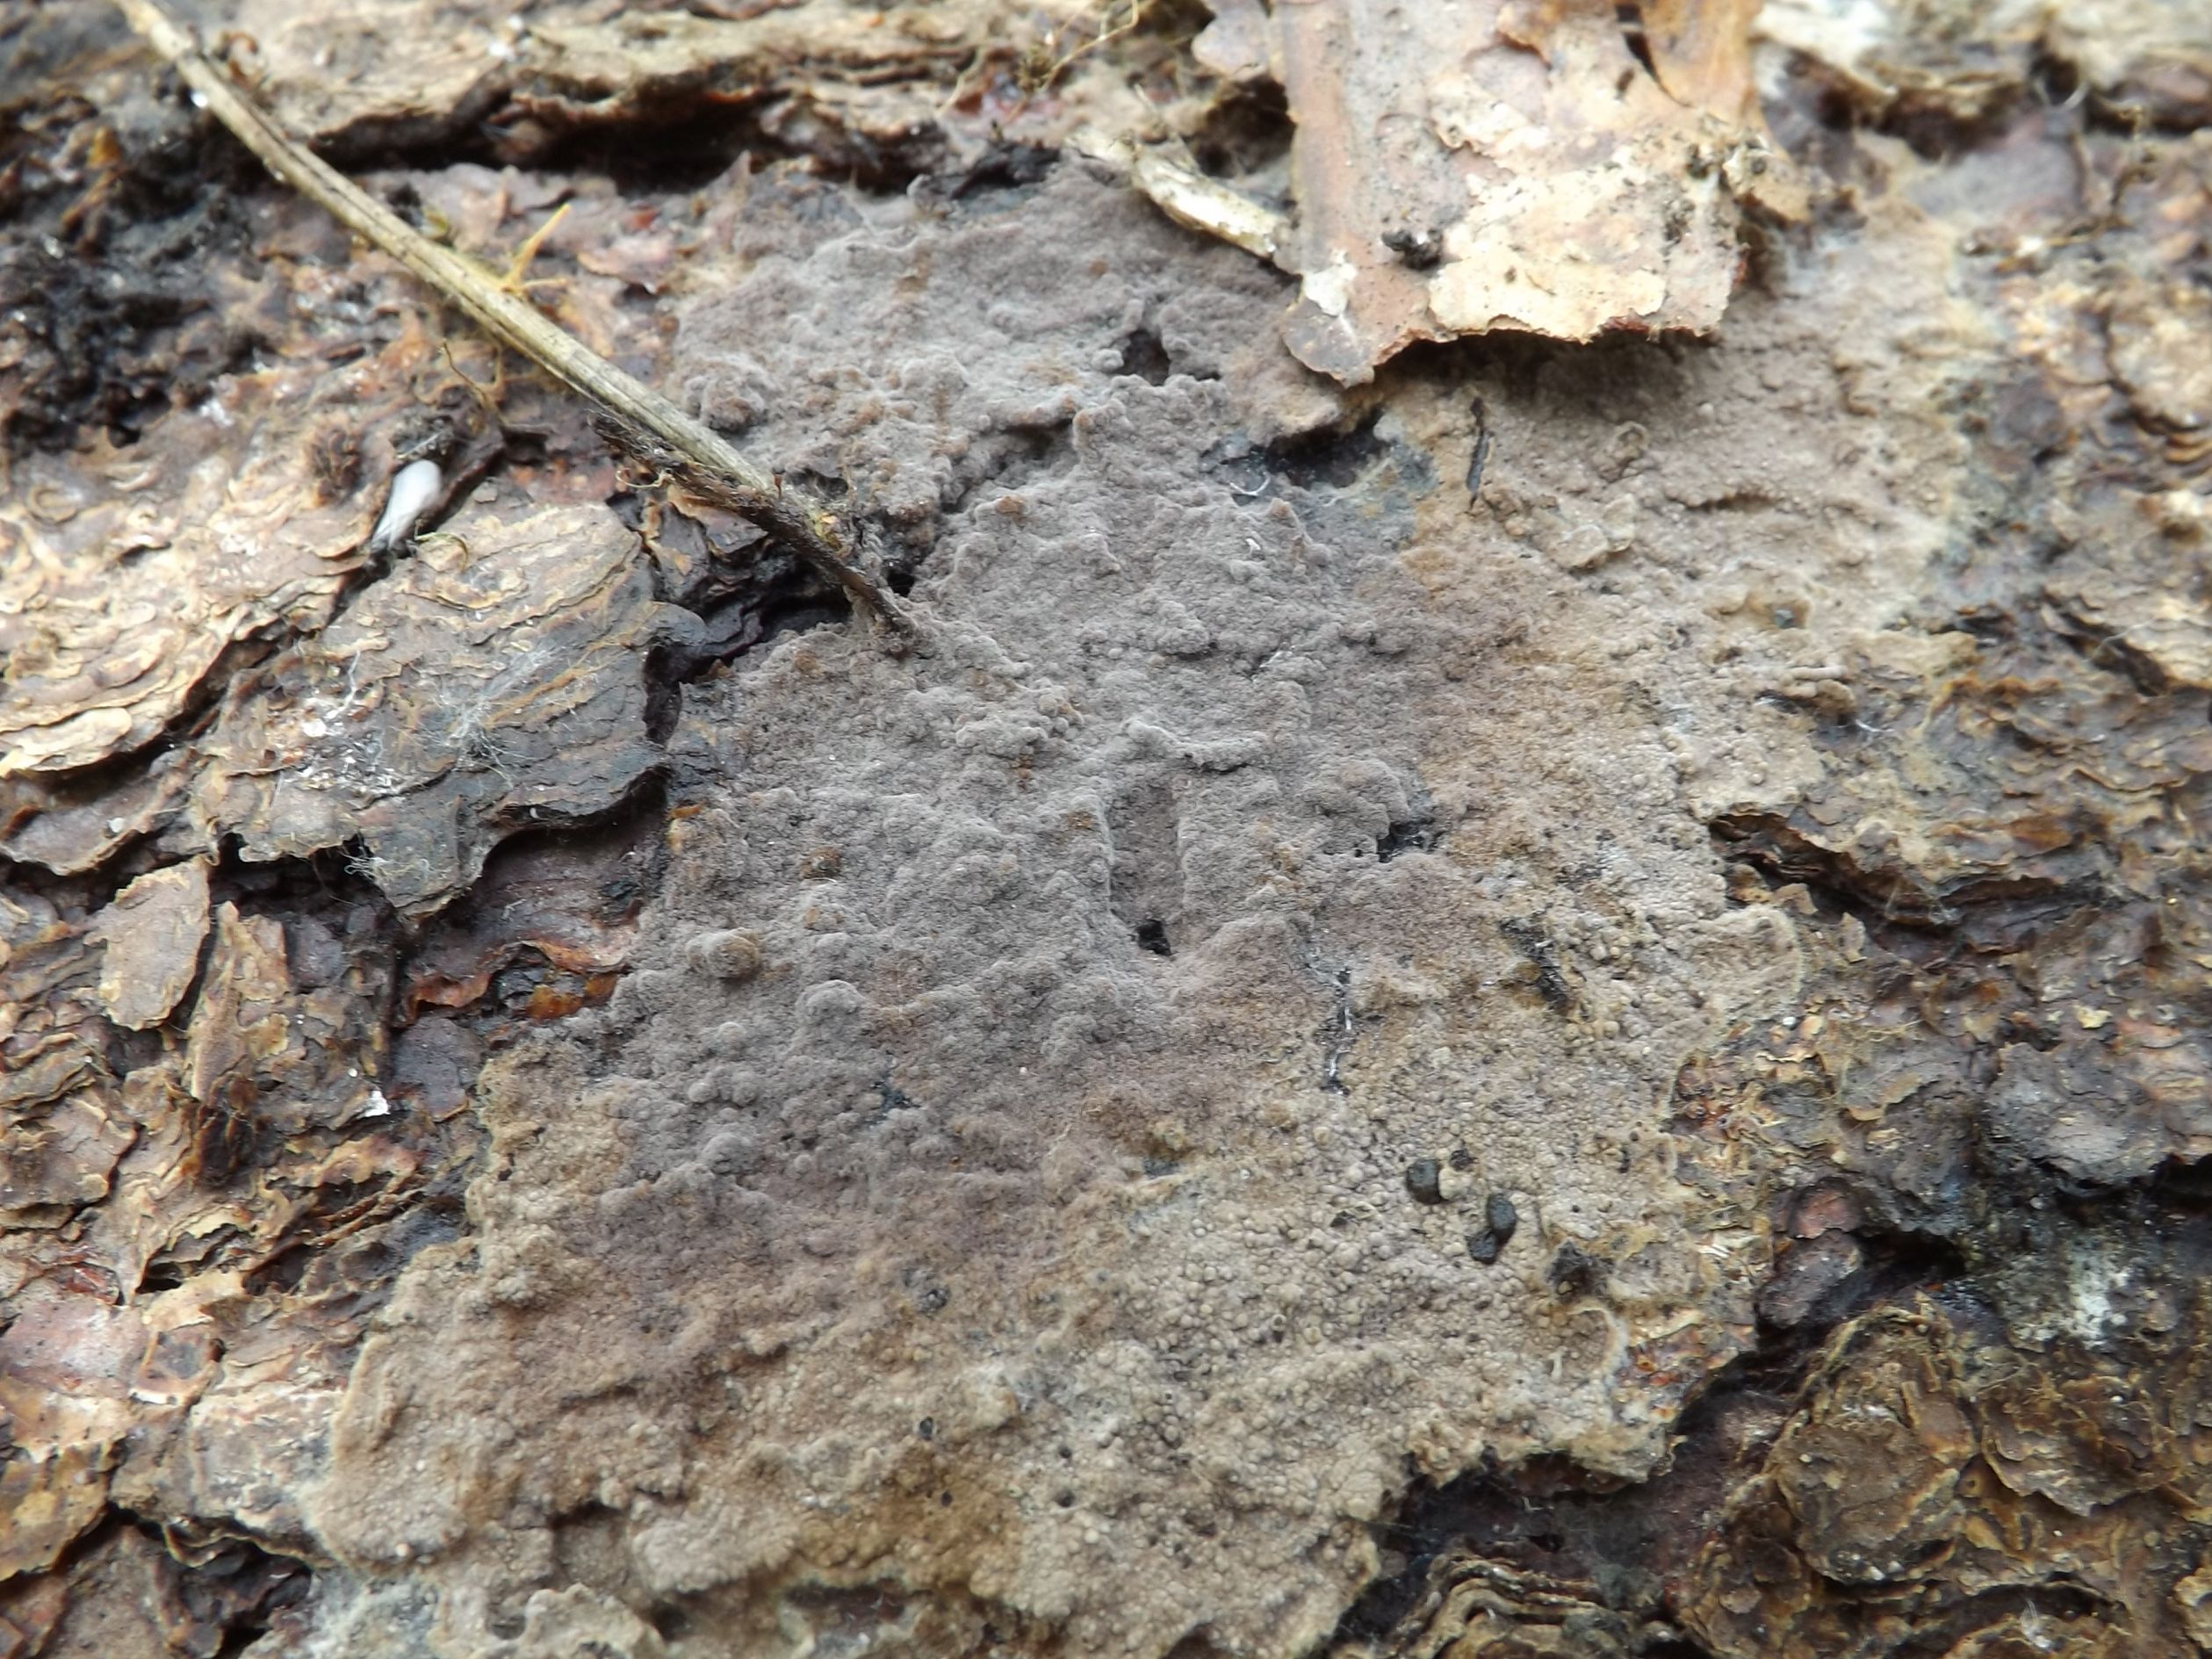
Thelephora extendens Kõljalg, I. Saar & Svant. 2024
(= Tomentella radiosa)
kutnerka krótkostrzępkowa
Uwagi do interpretacji cech mikroskopowych
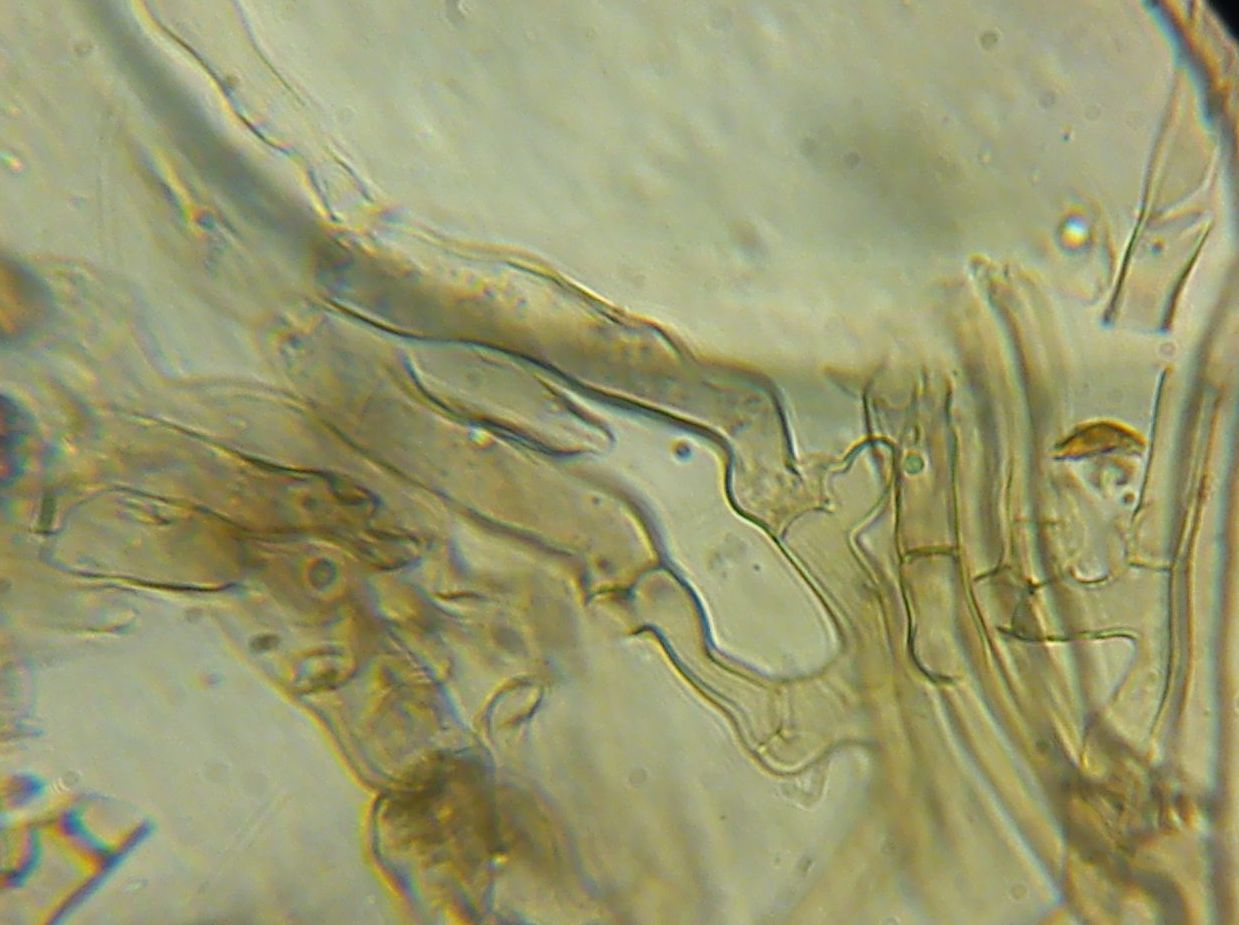
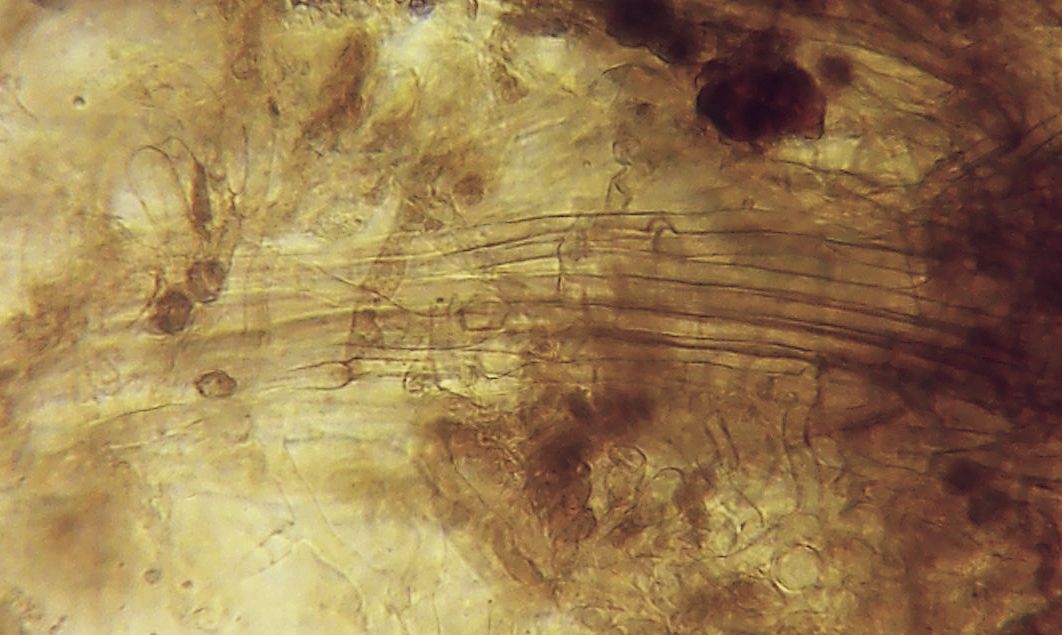
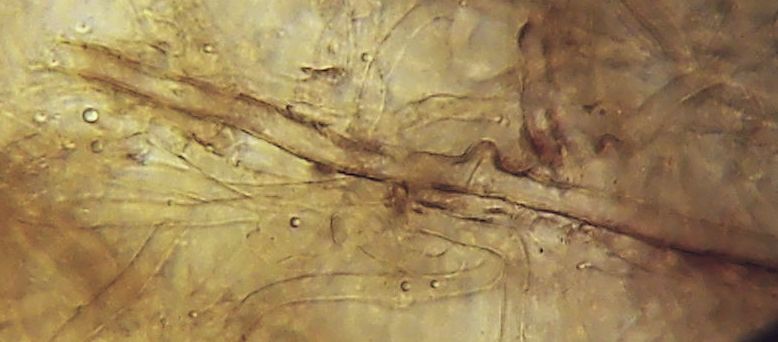
Szczególnie istotna w przypadku tego gatunku jest budowa ryzomorfów. Nie mają one postaci wyraźnie odgraniczonych, mocno zorganizowanych sznurów. W materiale typowym opisano je jako undifferentiated, uniform, loose, typu A według Agerera, z pojedynczymi strzępkami podobnymi do strzępek subiculum. Dlatego luźne wiązki strzępek obserwowane w dolnym subiculum mogą być trudne do odróżnienia od samego subiculum i nie powinny być automatycznie traktowane jako brak ryzomorfów.
W badanym okazie obserwowane wiązki strzępek są zgodne z takim sposobem organizacji. Ich obecność należy jednak traktować jako cechę potwierdzającą, a nie jako jedyną podstawę oznaczenia.
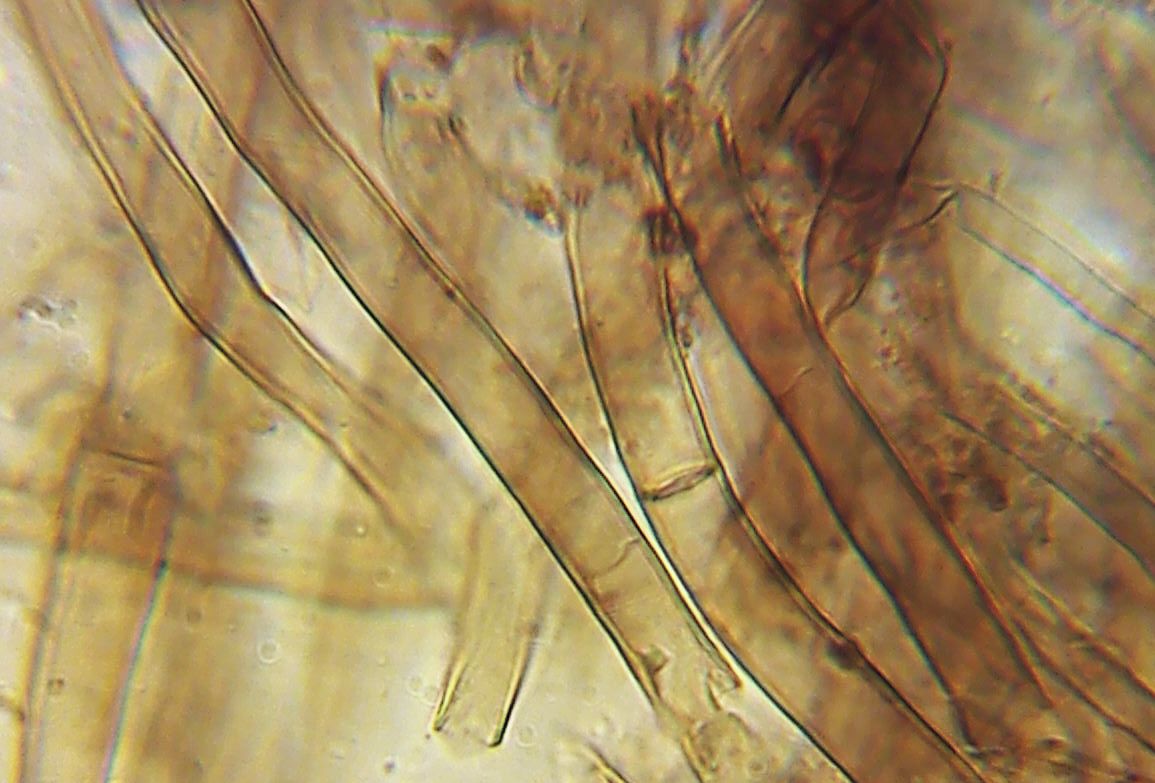
Na uwagę zasługują również strzępki dolnego subiculum. Ich szerokość, pogrubione ściany oraz brązowawe zabarwienie dobrze odpowiadają opisom materiału typowego. Yorou i Agerer zwracają ponadto uwagę na szerokie, grubościenne strzępki z dużymi otworami w klamrach oraz na częste anastomozy i krótkie boczne odgałęzienia. Nie wszystkie z tych cech muszą być widoczne w każdym preparacie.
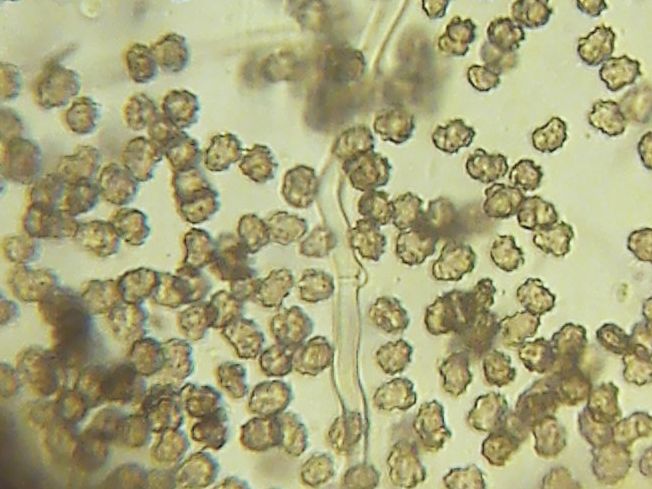
Pomiary zarodników należy traktować z pewną rezerwą, ponieważ wykonano je pod obiektywem 40×. Pomimo tego średnia 7,9 × 6,1 µm oraz proporcje zarodników pozostają zgodne z mniejszym zakresem podanym dla materiału typowego. Oznaczenie nie opiera się jednak wyłącznie na wymiarach, lecz na całym zespole cech, zwłaszcza ornamentacji i budowie subhymenium.
Tabela porównawcza cech badanego okazu z cechami Thelephora extendens (= Tomentella radiosa) według literatury.
| Cecha | Thelephora extendens (badany okaz) | Thelephora extendens / Tomentella radiosa (literatura) | Status zgodności |
|---|---|---|---|
| Podłoże | Kora świerka (Picea abies). | Gatunek notowany na martwym drewnie, w tym na drewnie drzew iglastych; w Polsce stwierdzany m.in. na rozłożonym drewnie Picea abies. [1, 2, 3, 6] | ZGODNE |
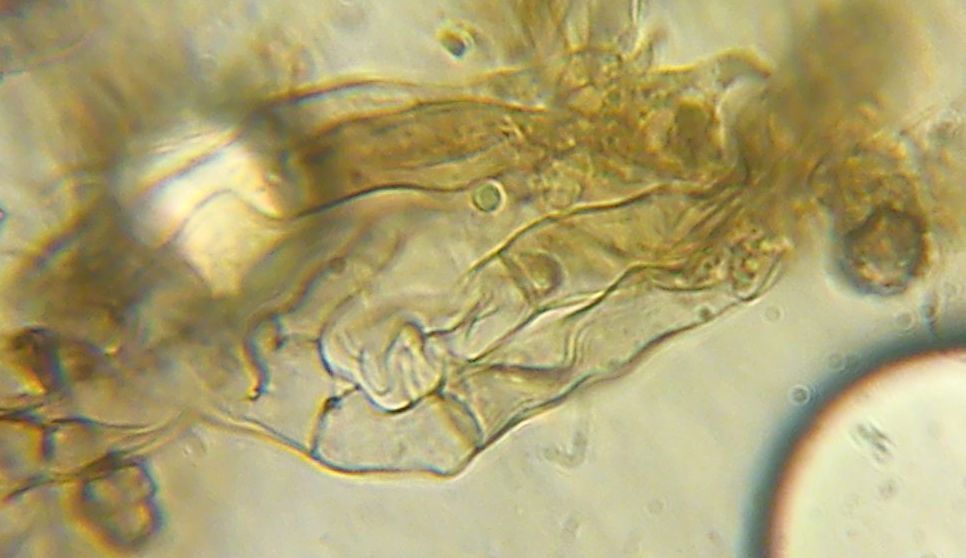
| Ryzomorfy | Obecne prawdopodobnie jako luźne wiązki strzępek w obrębie dolnego subiculum, bez wyraźnego odgraniczenia od jego pozostałej struktury. Strzępki w wiązkach podobne do występujących w dolnej części subiculum. | Ryzomorfy obecne w subiculum, szczególnie częste przy brzegu owocnika; szerokość 20–70 µm. Są nierozróżnicowane, jednorodne i luźno zbudowane (typ A według Agerera); pojedyncze strzępki 4–6(7) µm, z klamrami, cienko- do grubościennych. Istotne: ryzomorfy nie muszą być wyraźnie odgraniczonymi „sznurami” — ich struktura jest luźna i mało zróżnicowana. [2, 3, 5] | ZGODNE |
| Strzępki subiculum | Dolne subiculum zbudowane ze strzępek około 6–7,5 µm szerokości, miejscami z nieco pogrubionymi ścianami i wyraźną brązowawą zawartością wewnętrzną. W obserwowanym materiale widoczne również wiązki równolegle biegnących strzępek. | Strzępki subiculum 4–7(8) µm, miejscami rozdęte do 11 µm, wyjątkowo z rozdęciami balonowatymi do około 20 µm. Ściany pogrubione, 0,5–1,5 µm; strzępki jasnobrązowe do brązowych w wodzie i w 2,5% KOH. Klamry szerokie, często grubościenne, z dużym otworem; częste anastomozy oraz boczne odgałęzienia. [2, 3] | ZGODNE |
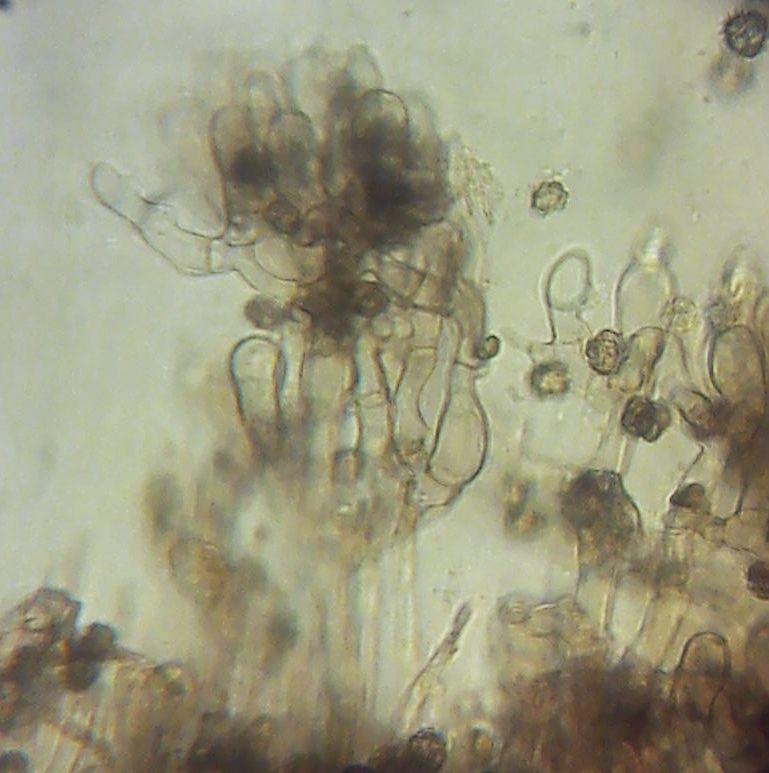
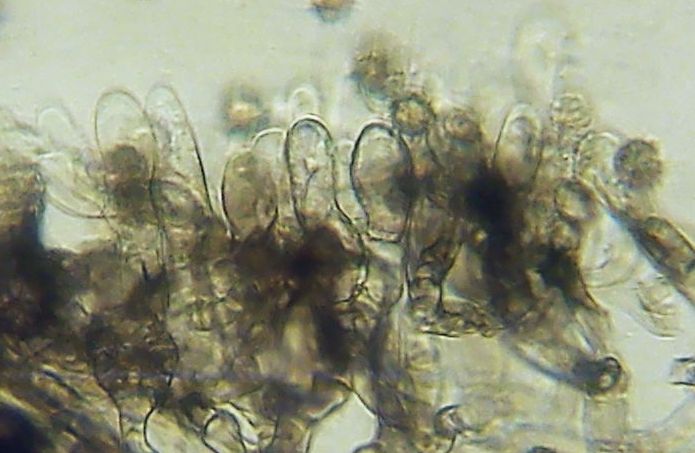
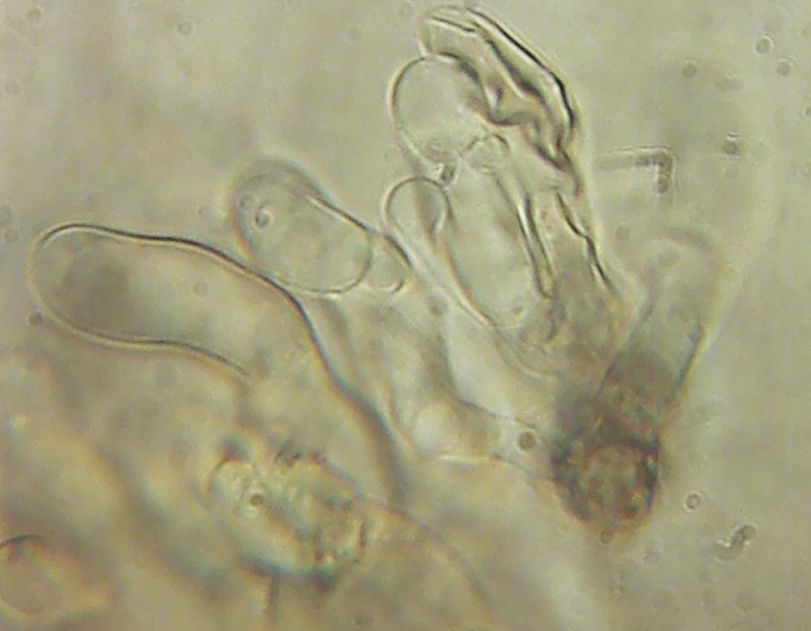
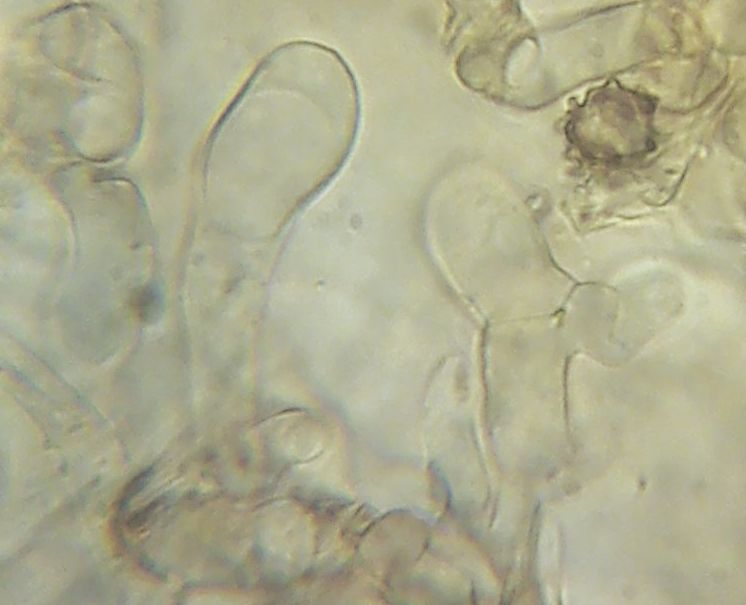
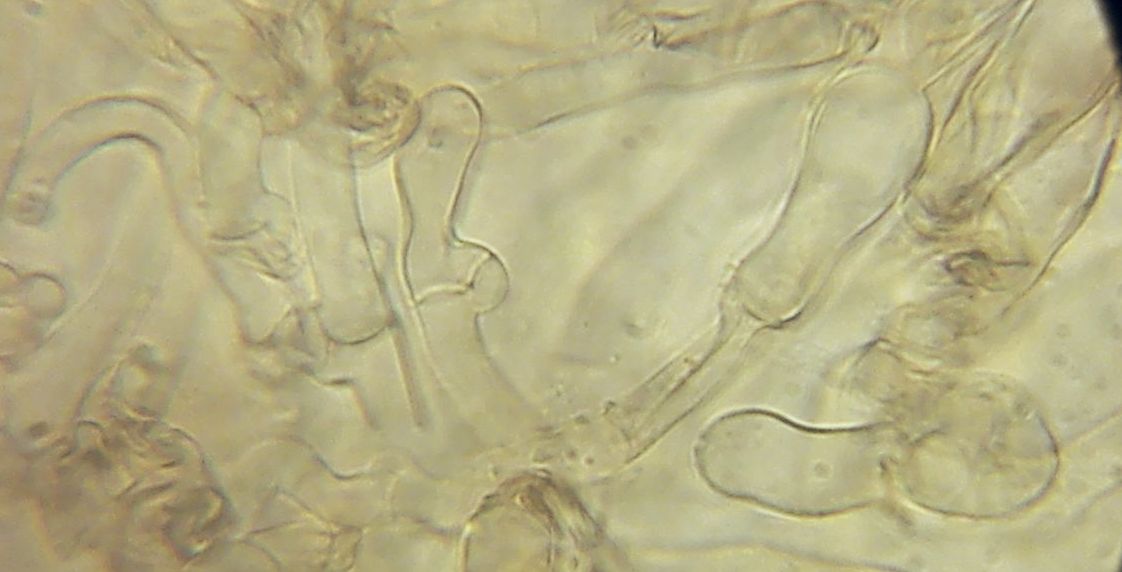
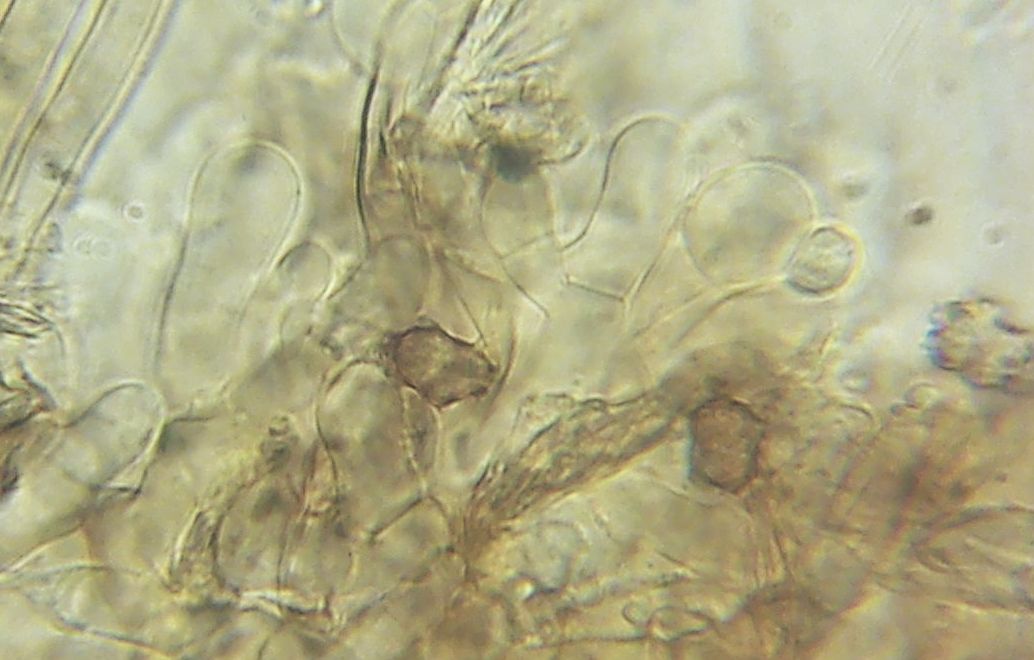
| Subhymenium i cystydy | Strzępki podhymenialne zwykle 4–5 µm szerokości, miejscami rozdęte do około 7 µm, wyjątkowo do 11 µm. Cystyd brak. | Strzępki subhymenium 5–8 µm, często krótkokomórkowe i rozdęte, ze ścianami 0,5–1 µm, zawsze pogrubionymi u podstawy. Cystyd brak. Współczesny klucz wyróżnia T. extendens właśnie przez krótkokomórkowe, rozdęte strzępki subhymenium. [2, 3, 5] | ZGODNE |
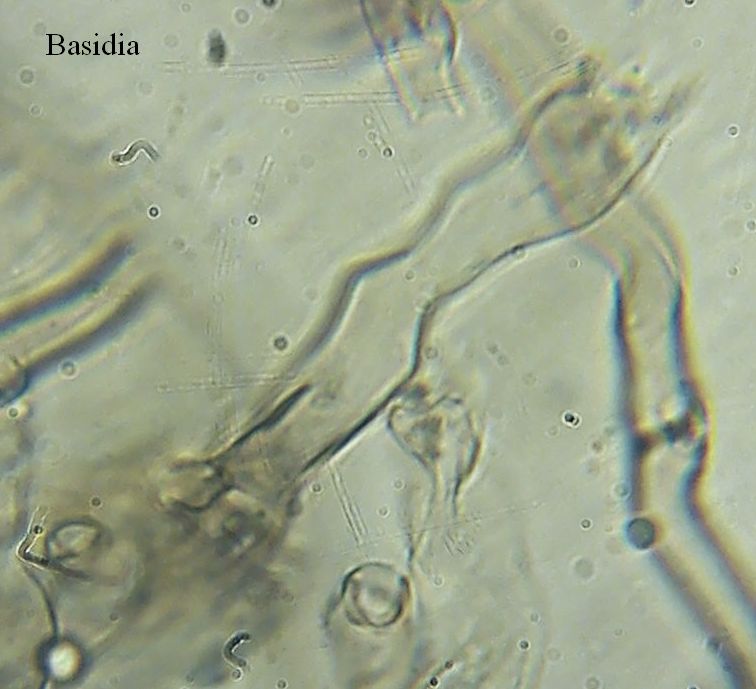
| Podstawki | Cylindryczne do lekko rozszerzonych ku górze; przy podstawie około 6–7 µm, na szczycie 8–10 µm. Zmierzono 33–43–45 µm; obserwowano również wyraźnie dłuższe podstawki, których nie udało się wiarygodnie udokumentować pomiarem. | 40–55 µm długości, 6–8 µm szerokości u podstawy i 8–10 µm na szczycie; maczugowate, 4-zarodnikowe, z klamrą u podstawy. [2, 3] | ZGODNE |
| Zarodniki | (6,4) 7,2–8,7 (9,5) × (5,2) 5,4–6,8 (7,2) µm; Q = (1,1) 1,11–1,5 (1,7), N = 37; Me = 7,9 × 6,1 µm, Qe = 1,3. Zarodniki mierzone przy ograniczonym powiększeniu 40× (około ±0,5 µm), dlatego wartości skrajne należy traktować orientacyjnie. | W typie opisano dwa zakresy zarodników: pierwszy około (6) 6,5–7,5 × 6–8 µm, drugi 7,5–11,5 (13) × 7–9 µm. Zarodniki mogą być elipsoidalne, częściowo płatowate, trójkątne w widoku frontalnym oraz elipsoidalne do nerkowatych w widoku bocznym. Literatura podkreśla znaczną zmienność kształtu i rozmiaru. [2, 3] | ZGODNE |
| Ornamentacja zarodników | Bardzo krótka, do około 0,5 µm; przeważnie brodawkowata, miejscami lekko rozwidlona; sporadycznie widoczne typowe krótkie kolce. | Ornamentacja echinulowana, bardzo krótka; u materiału typowego aculei około 0,2–0,4 µm, gęste i nieregularne. Współczesny klucz określa zarodniki jako tuberculate-echinulate i podkreśla obecność nielicznych rozwidlonych brodawek. Jest to jedna z ważniejszych cech diagnostycznych gatunku. [2, 5] | ZGODNE |
| Reakcja w KOH | Ujemna; brak cyjanescentnej reakcji. | T. radiosa nie wykazuje cyjanescentnej reakcji podstawek w KOH. Jest to ważna cecha odróżniająca ją od podobnej T. ellisii, której podstawki wykazują reakcję cyjanescentną. [3, 5] | ZGODNE |
| Zespół cech diagnostycznych | Brak cystyd; krótkokomórkowe i rozdęte subhymenium; grubościenne, brązowawe strzępki subiculum; luźne wiązki odpowiadające nierozróżnicowanym ryzomorfom; podstawki około 40 µm i dłuższe; małe do średnich zarodniki z bardzo krótką, głównie brodawkowatą ornamentacją; KOH ujemne. | Zestaw cech odpowiada opisowi T. radiosa, obecnie Thelephora extendens. Szczególnie diagnostyczne są: rozdęte subhymenium, bardzo krótka ornamentacja zarodników z nielicznymi rozwidlonymi brodawkami oraz obecność nierozróżnicowanych, luźnych ryzomorfów w subiculum. [2, 3, 5] | ZGODNE |
Wykaz literatury
[1] Larsen, M.J. (1974). A Contribution to the Taxonomy of the Genus Tomentella. Mycologia Memoirs 4: 1–145.
[2] Agerer, R. & Bougher, N.L. (2001). Tomentella subamyloidea sp. nov. and T. radiosa (Thelephoraceae, Hymenomycetes, Basidiomycota) from Australia. Australian Systematic Botany 14(4): 607–614.
[3] Yorou, N.S. & Agerer, R. (2007). Type studies of three tomentelloid species (Basidiomycota, Thelephorales): Tomentella radiosa, Tomentella cinereoumbrina and Tomentella punicea. Nova Hedwigia 85: 521–539.
[4] Kõljalg, U. (1996). Tomentella (Basidiomycota) and related genera in Temperate Eurasia. Synopsis Fungorum 9. Fungiflora, Oslo: 1–213.
[5] Dämmrich, F. (2006). Studien der tomentelloiden Pilze in Deutschland – unter besonderer Berücksichtigung der Zeichnungen von Frau Dr. H. Maser aus den Jahren 1988–1994; Teil 1: Die Gattung Tomentella. Zeitschrift für Mykologie 72: 167–212.
[6] Kõljalg, U., Saar, I. & Svantesson, S. (2024). Merging the genus Tomentella with Thelephora (Fungi, Thelephorales). Folia Cryptogamica Estonica 61: 67–86.
Galeria zdjęć
Lokalizacja: Pólko, 0.5 km E.
Siedlisko: Bór iglasty (sosna, świerk).
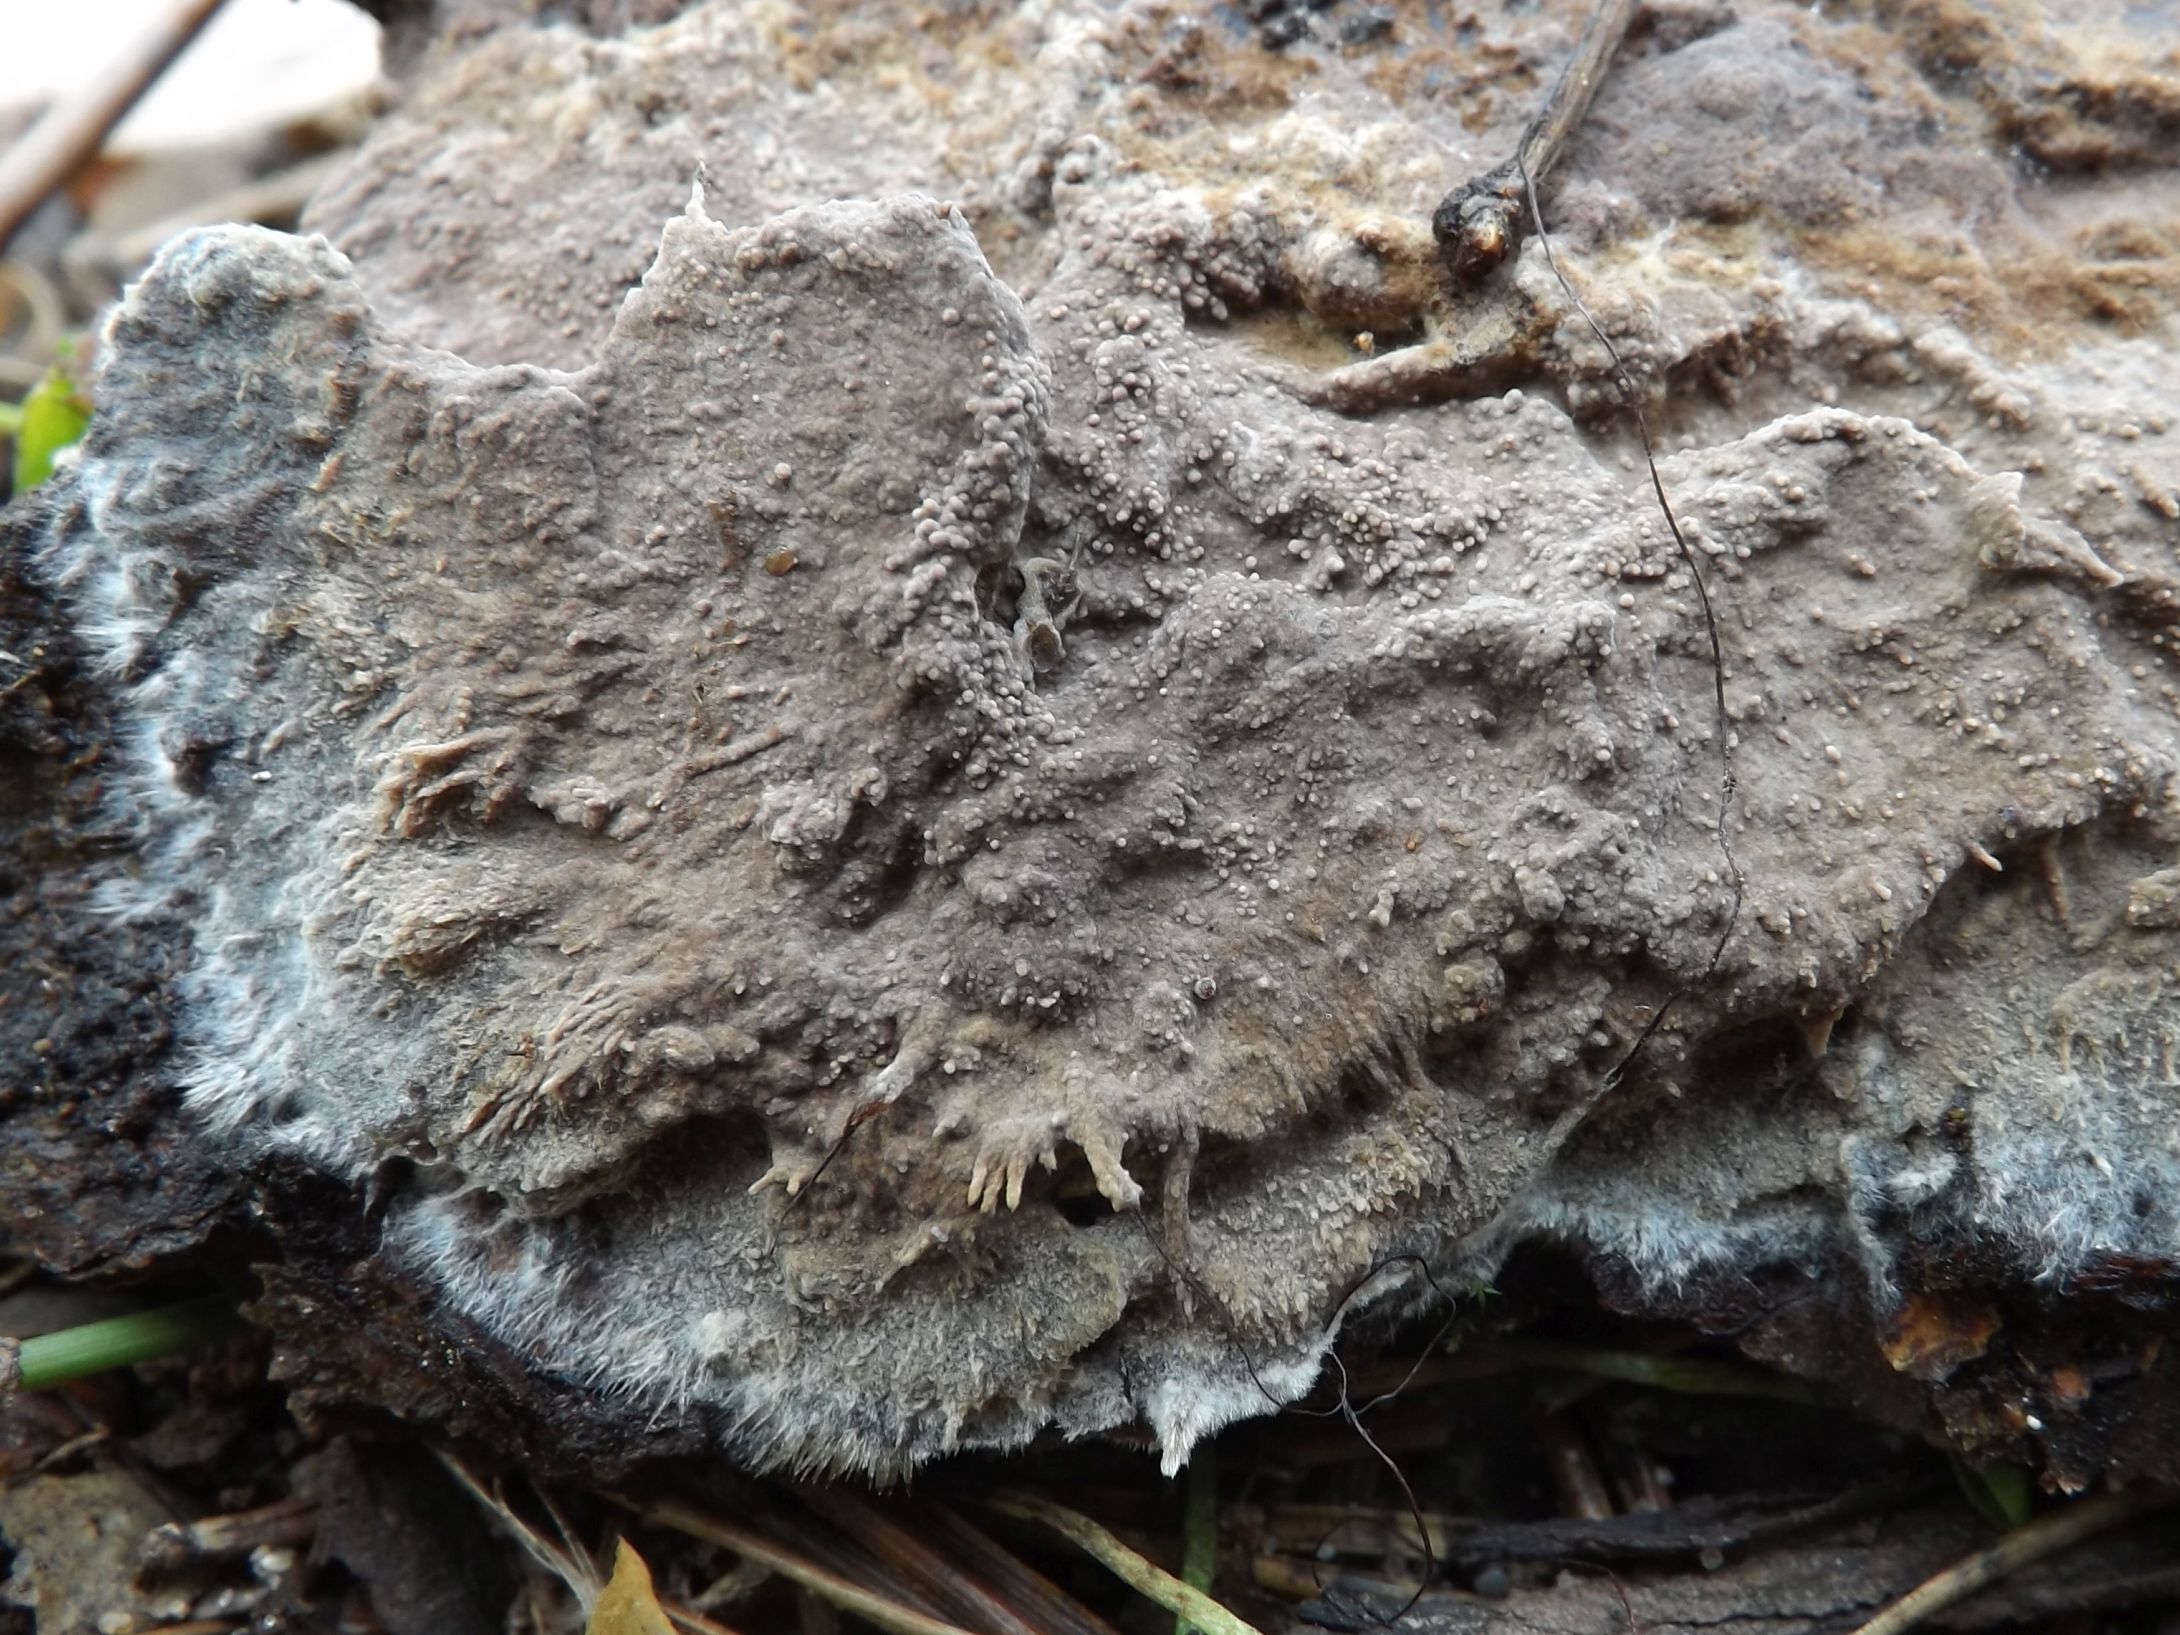
Substrat: Kora świerka (Picea abies), leżąca na ziemi.