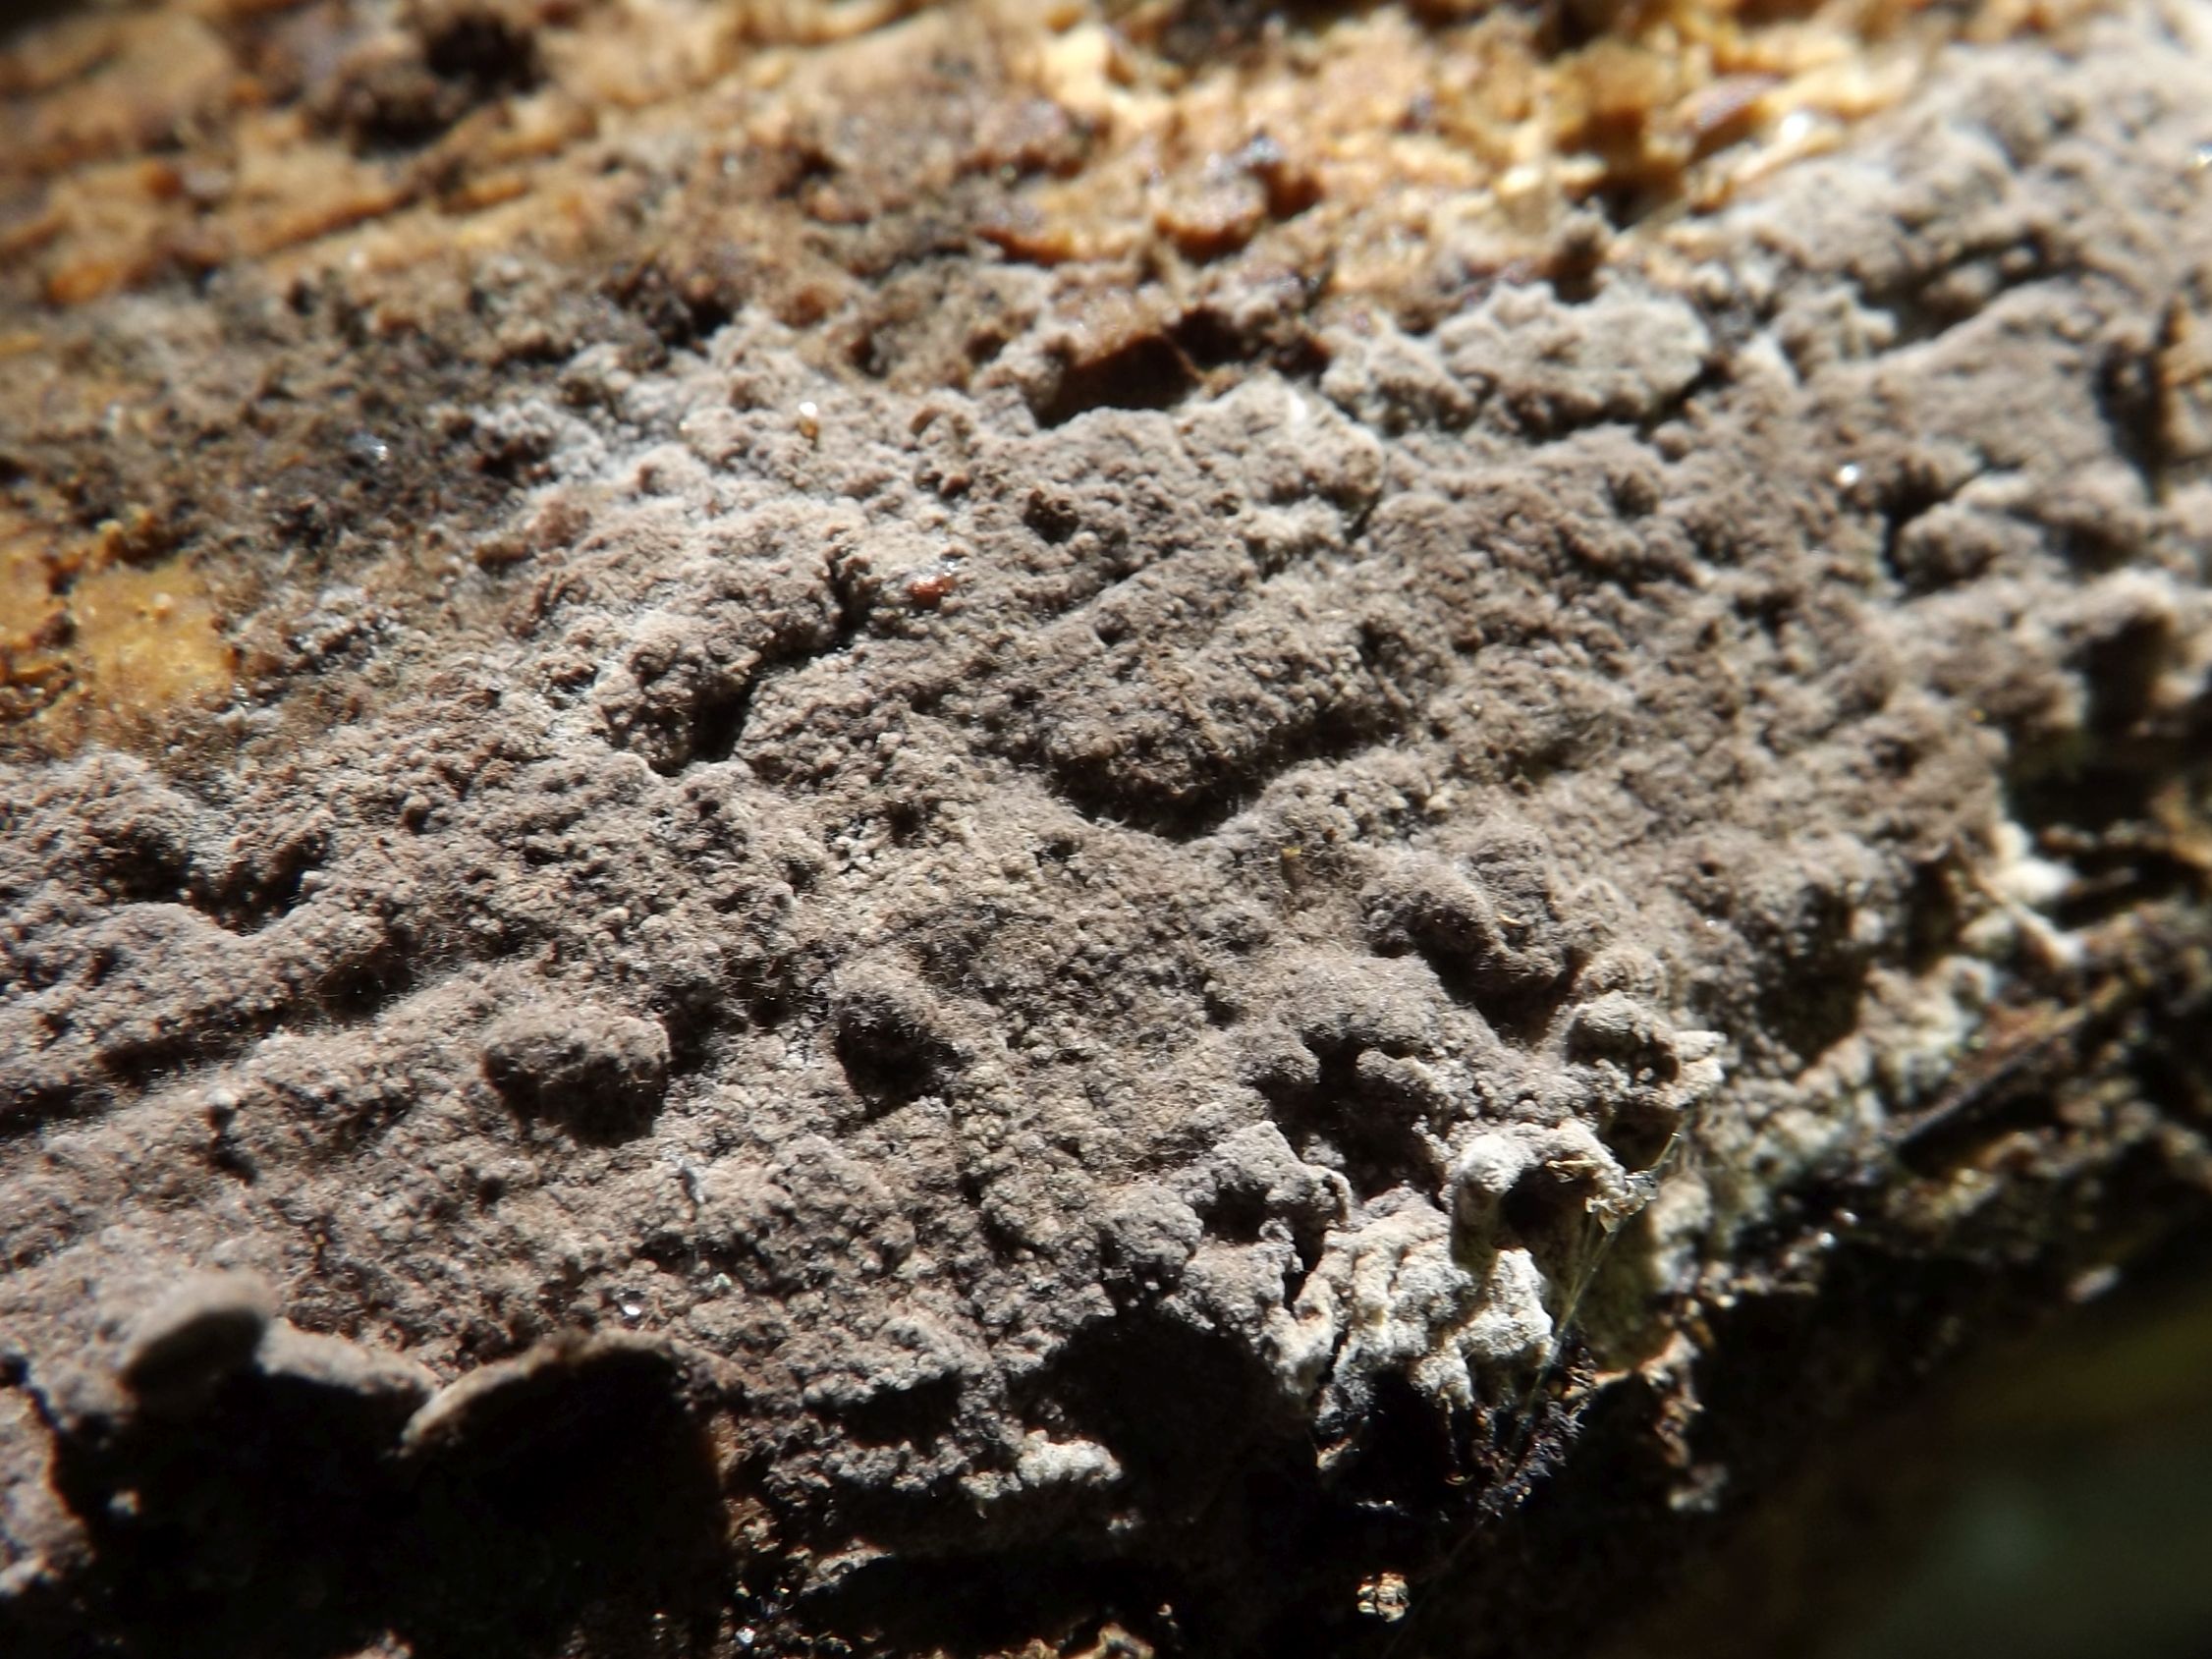
Thelephora lapida (Wakef.) Kõljalg, I. Saar & Svant. 2024
(= Tomentella lapida)
kutnerka ...
Uwagi dotyczące interpretacji materiału zielnikowego
Materiał Tomentella okazał się bardziej podatny na zmiany związane z wysychaniem, niż można było początkowo przypuszczać. W eksykacie obserwowano zapadanie się części zarodników, podstawek oraz niektórych cienkościennych strzępek. Z tego względu pomiary struktur w materiale zielnikowym należy interpretować ostrożnie, szczególnie gdy widoczne są oznaki zapadnięcia lub deformacji. W miarę możliwości cechy mikroskopowe, zwłaszcza wymiary zarodników i podstawek, najlepiej dokumentować na świeżym materiale.
Z tego względu szczególnie pomiary zarodników i podstawek wykonane wyłącznie na materiale wysuszonym należy traktować z pewną ostrożnością. Do pomiarów wybierane były przede wszystkim struktury dobrze zachowane, o naturalnym kształcie. Zarodników wyraźnie zapadniętych lub zdeformowanych nie uwzględniano w zakresie wymiarów.
W przypadku eksykatu pomocne może być również stopniowe i łagodne nawilżanie materiału przed wykonaniem preparatów, jednak nawet po regeneracji nie wszystkie struktury muszą odzyskać swój pierwotny kształt.
Tabela porównawcza cech badanego okazu z cechami Tomentella lapida według literatury.
| Cecha | Tomentella lapida (badany okaz) | Tomentella lapida (literatura) | Status zgodności |
|---|---|---|---|
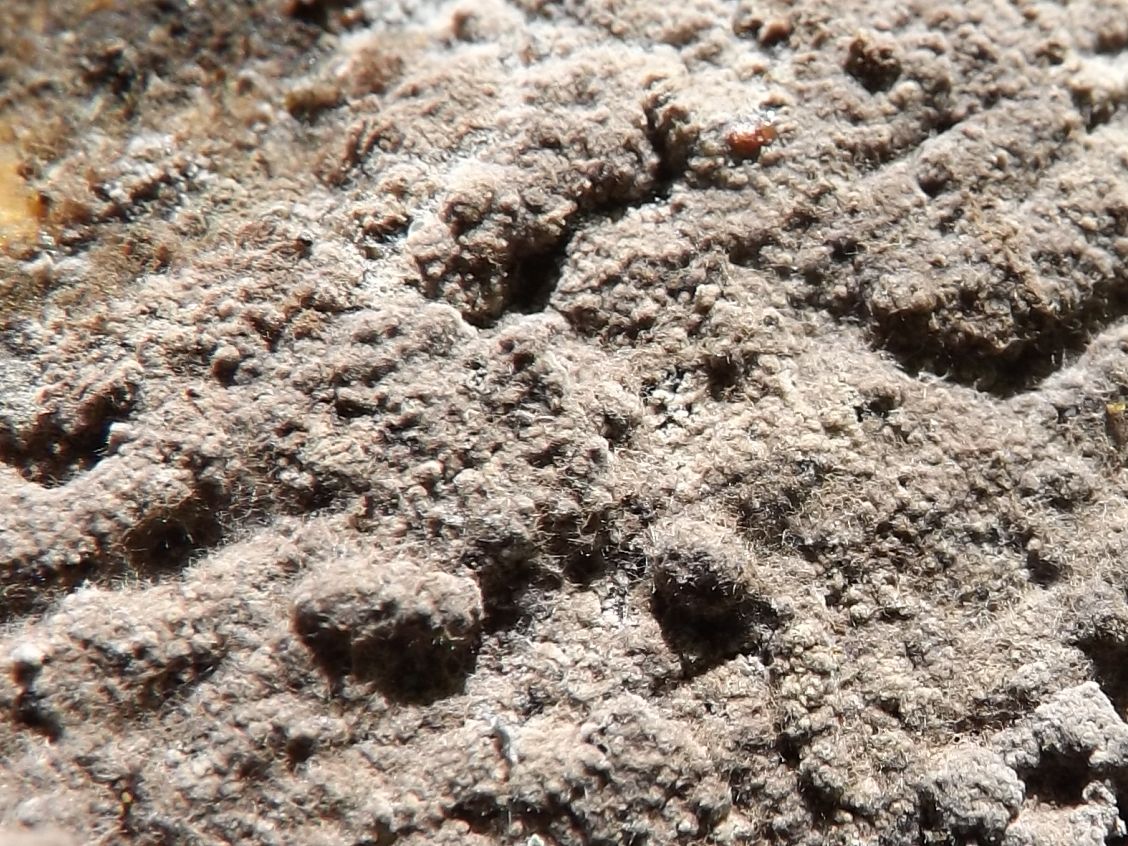
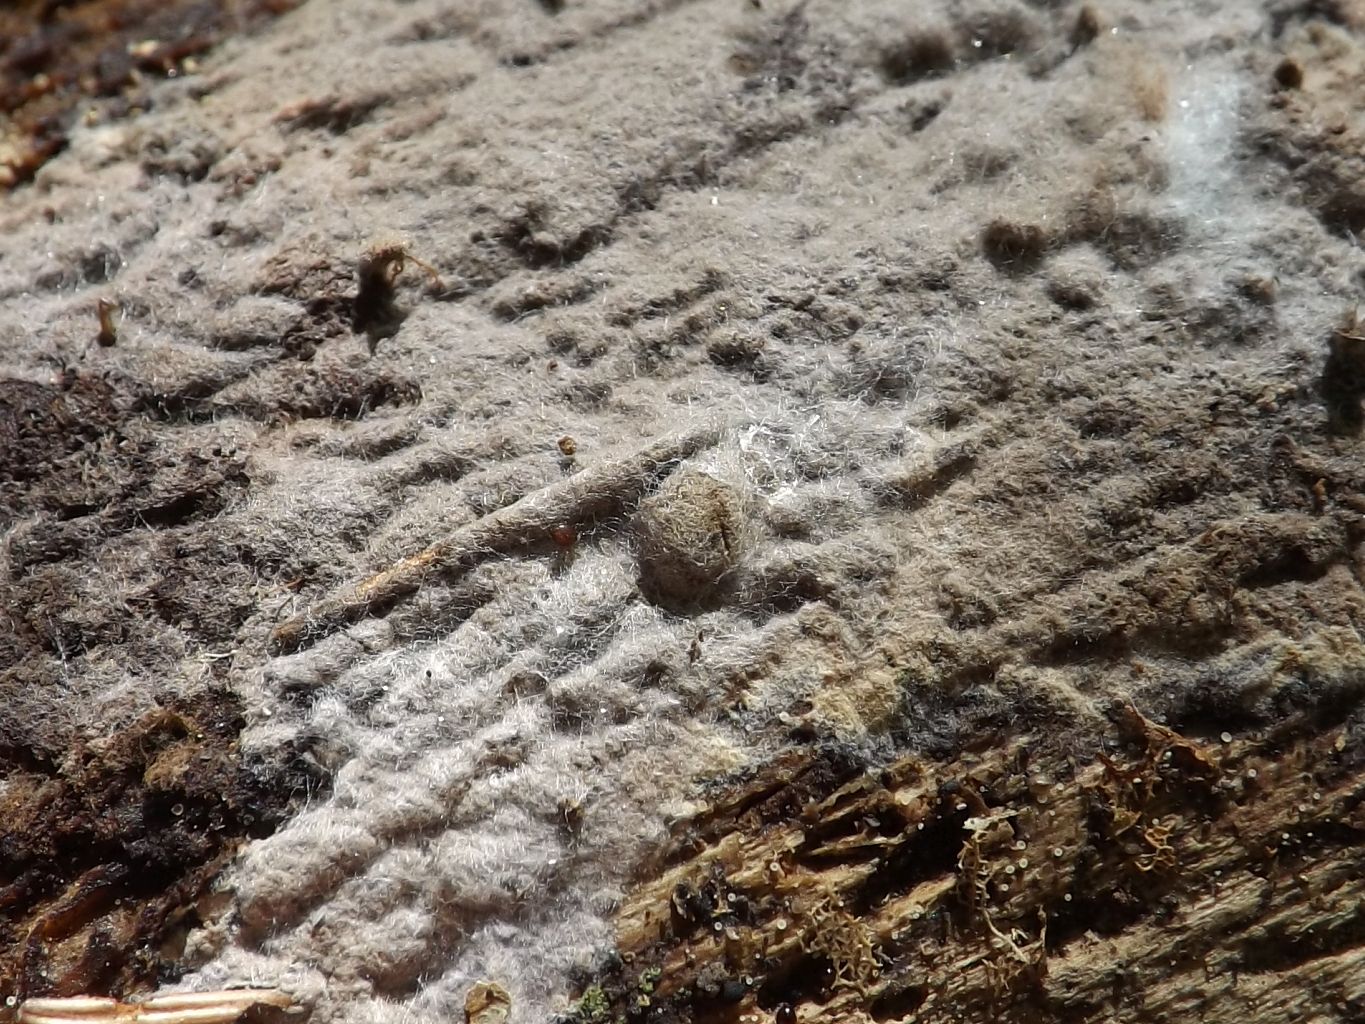
| Owocnik i hymenofor | Owocnik resupinatowy, przylegający do podłoża, ciągły. Hymenofor szarobrązowy, powierzchnia nierówna, miejscami grudkowata; ogólny charakter typowy dla gatunku. | Basidioma resupinatum, przylegające do podłoża, mucedinoidalne i ciągłe. Hymenofor gładki, ciągły, szary, ciemnoszary do ciemnobrązowego. Subiculum pajęczynowate do włóknistego, tej samej barwy co hymenofor lub jaśniejsze. [1, 2] | ZGODNE |
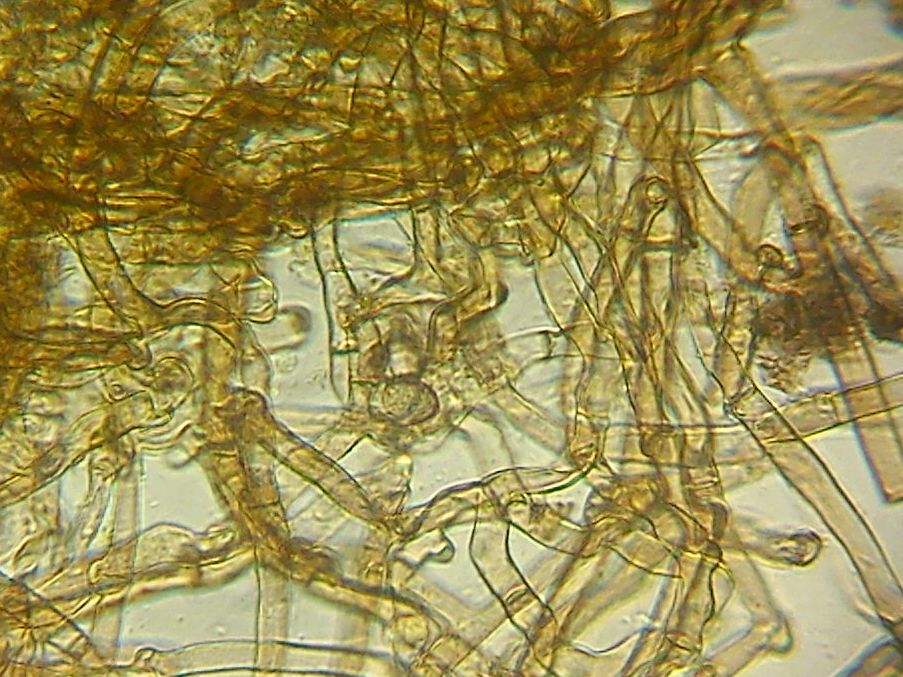
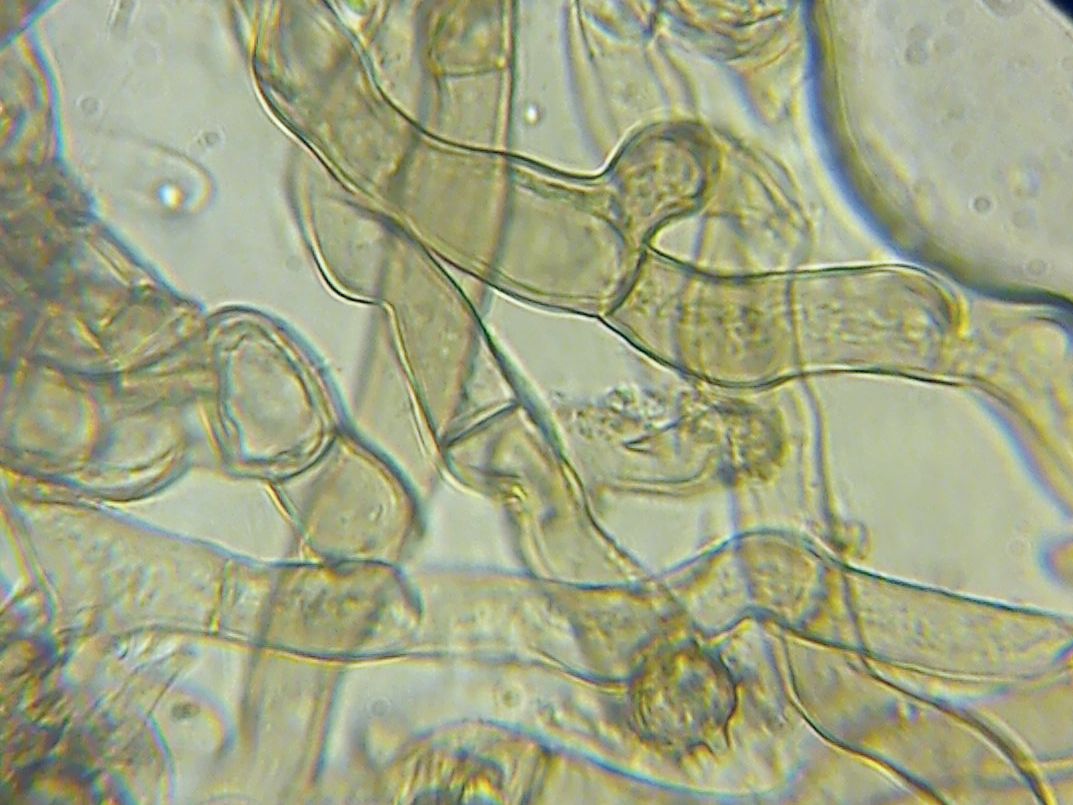
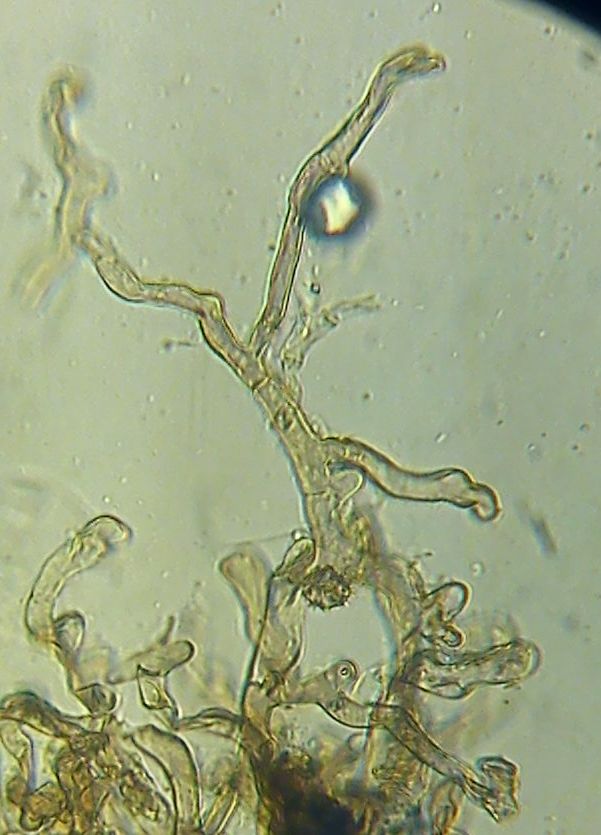
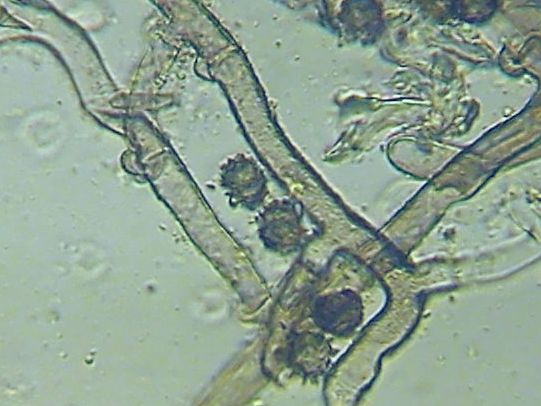
| Subiculum | Stosunkowo subtelne. W dolnej warstwie obecne pojedyncze brązowawe, inkrustowane strzępki. Wyżej strzępki podobnej średnicy, miejscami lokalnie rozdęte. | Subiculum arachnoidalne do włóknistego. Strzępki subikularne duże, grubościenne, silnie inkrustowane, często faliste, kręte i meandrycznie powyginane. [1, 2] | ZGODNE |
| Barwa strzępek subikulum | Dolne strzępki brązowawe, wyżej jaśniejsze; miejscami bezbarwne do jasnobrązowych. | Bezbarwne, jasnobrązowe do jasnoczerwonych w wodzie. [1] | ZGODNE |
| Ryzomorfy | Brak. | Nie stwierdzono. W starszej literaturze wspominano jednak o możliwości występowania niewyraźnych, monomitycznych ryzomorfów w subiculum. [1] | ZGODNE |
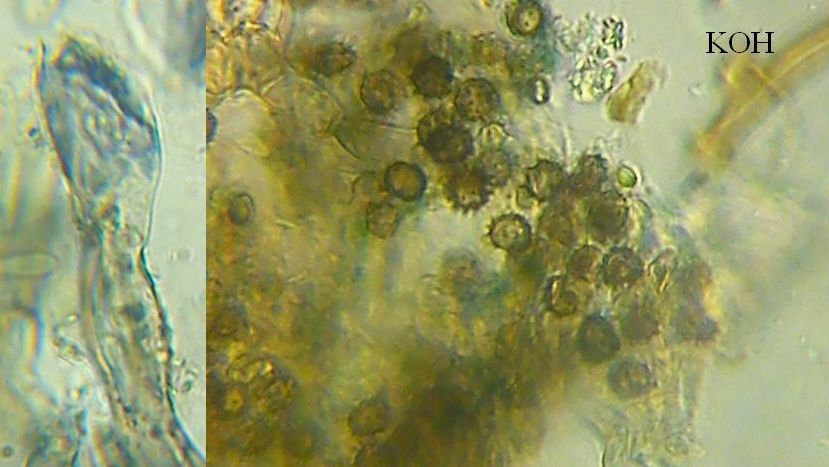
| Reakcja KOH | Wyraźna cyjanescencja; strzępki przyjmują barwę zielono-niebieską. | Strzępki subikularne w 2,5% KOH stają się niebiesko-zielone (cyanescent); inkrustacja częściowo rozpuszcza się, ale pozostaje widoczna. Strzępki subhymenialne również wykazują cyjanescencję. [1, 2] | ZGODNE |
| Strzępki subikularne – średnica | 5,5–8 µm w dolnej warstwie. Wyżej zasadniczo 6–8 µm; sporadycznie lokalnie rozdęte do około 10 µm. | 6–9(11) µm. Strzępki grubościenne, ścianki około 1–2 µm. Często faliste, zatokowate i meandrycznie powyginane. [1] | ZGODNE |
| Inkrustacja strzępek subikularnych | Obecna, szczególnie w dolnej warstwie subiculum; strzępki brązowawe i wyraźnie inkrustowane. | Silna inkrustacja strzępek subikularnych, rozpuszczająca się częściowo w 2,5% KOH. Jest to jedna z najważniejszych cech diagnostycznych gatunku. [1, 2] | ZGODNE |
| Sprzążki | Obecne. | Strzępki subikularne i subhymenialne ze sprzążkami; proste przegrody rzadkie w strzępkach subikularnych. [1] | ZGODNE |
| Strzępki subhymenium | Około 6–8 µm; miejscami lokalnie pogrubiałe. Zakres grubości zdecydowanie szerszy w dół, cieńsze strzępki nie mierzone ze względu na zapadnięte ścianki. | 3–7 µm, cienko- do grubościennych, o ściankach około 0,5–1 µm; częściowo inkrustowane. [1] | ZGODNE / Z ZASTRZEŻENIEM |
| Cystydy | Nie stwierdzono. | Brak. [1, 2] | ZGODNE |
| Podstawki | Mierzone podstawki o zakresie długości 54 - 64 µm. Ze względu na badanie z eksykatu, dokładniejszych pomiarów nie wykonano, podstawki silnie pozapadane! | 55–75(80) × 8,5–10 µm w części wierzchołkowej, 4–8 µm u podstawy; podklawowate, zwykle kręte, ze sprzążką u podstawy. Częste przegrody poprzeczne, niekiedy 2–3. Wewnątrz podstawek mogą występować bezsprzążkowe strzępki. [1] | ZGODNE |
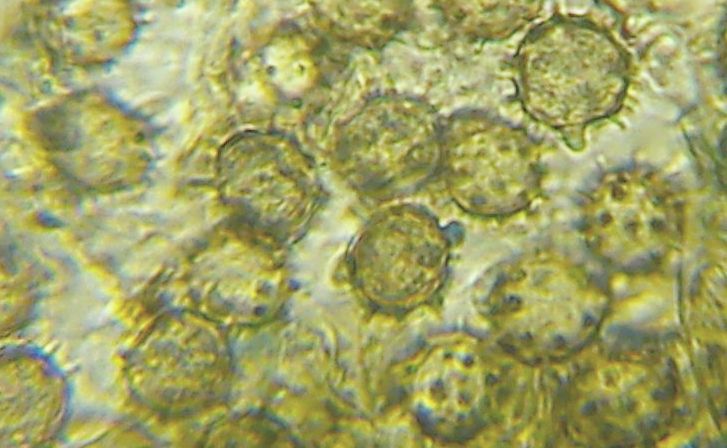
| Zarodniki – wymiary | Me = 8,2 × 7,3 µm; Qe = 1,1. Zarodniki wyraźnie zapadnięte lub zdeformowane zostały pominięte. | 8–10(11) × 7–8(10) µm w widoku frontalnym; 8–10 × 7,5–9(10) µm w widoku bocznym. [1] | ZGODNE |
| Kształt zarodników | Zasadniczo kuliste do szeroko elipsoidalnych; Qe = 1,1. | W widoku frontalnym subglobozowe do globozowych, w bocznym globozowe do szeroko elipsoidalnych. [1] | ZGODNE |
| Ornamentacja zarodników | Kolce pojedyncze, zasadniczo do około 1,5 µm; sporadycznie do około 2 µm. | Kolce izolowane, długie, 1–2,5 µm. Apikulus częściowo amyloidalny. [1, 2] | ZGODNE |
| Reakcja zarodników w KOH | Zarodniki po zastosowaniu KOH ciemnieją i nabierają wyraźnego zielonkawego do zielononiebieskiego odcienia; reakcja częściowa, cyanescentna. | W 2,5% KOH zarodniki częściowo cyanescentne; obserwowane przejście do barwy niebiesko-zielonej. [1] | ZGODNE |
| Reakcja strzępek w KOH | Strzępki po zastosowaniu KOH ciemnieją i przyjmują zielonkawoniebieskie zabarwienie. | Strzępki subikularne oraz część elementów subhymenialnych wykazują cyjanescencję w 2,5% KOH, przyjmując barwę niebiesko-zieloną. [1] | ZGODNE |
| Cyanofilia zarodników | Nie badano z użyciem błękitu bawełnianego. | Zarodniki określane jako niecyanofilne. Cyjanescencja w KOH nie jest równoznaczna z cyanofilią. [1] | NIE SPRAWDZONO |
| Chlamydospory | Nie stwierdzono. | Nieobecne. [1] | ZGODNE |
Uwagi do literatury
Najważniejszym źródłem dla interpretacji tego okazu jest praca Yorou & Agerer (2011), w której Tomentella lapida została szczegółowo opracowana pod względem makroskopowym i mikroskopowym. Autorzy opisali między innymi budowę subiculum, strzępki subhymenialne, podstawki, zarodniki, cystydy oraz reakcje chemiczne.
Szczególnie istotną cechą diagnostyczną są duże, grubościenne i silnie inkrustowane strzępki subikularne. W badanej kolekcji obserwowano je również, przy czym ich średnica zasadniczo mieściła się w zakresie 5,5–8 µm w dolnej części subiculum oraz około 6–8 µm w warstwach położonych wyżej. Sporadycznie obserwowano miejscowe rozdęcia do około 10 µm.
Szczególnie interesującą zgodność stanowi również przebieg strzępek. W badanej kolekcji obserwowano strzępki faliste, kręte i miejscami wyraźnie meandryczne, co odpowiada obrazowi przedstawionemu w literaturze dla Tomentella lapida.
Istotną cechą jest również wyraźna cyjanescencja obserwowana po zastosowaniu KOH, przejawiająca się zmianą barwy strzępek na zielononiebieską. W literaturze podobną reakcję opisano zarówno dla strzępek subikularnych, jak i części elementów subhymenialnych.
Nowsze europejskie opracowania tomentelloidów prowadzą do Tomentella lapida poprzez kombinację cech obejmującą inkrustowane strzępki subikularne, zarodniki subglobozowe do elipsoidalnych o długości około 7,5–9,5 µm oraz ornamentację zarodników z kolcami osiągającymi około 2 µm.
Współczesne ujęcia taksonomiczne stosują obecnie nazwę Thelephora lapida. W starszej literaturze oraz w części opracowań rodzaju Tomentella gatunek występuje jednak pod nazwą Tomentella lapida. Przy porównywaniu opisów należy więc uwzględniać obie kombinacje nazwy.
Gatunki podobne
Tomentella neobourdotii — jeden z najważniejszych gatunków podobnych. Podobnie jak T. lapida posiada brązowe, grubościenne i inkrustowane strzępki subikularne. Strzępki u T. neobourdotii są jednak zasadniczo węższe, zwykle do około 6 µm, a zarodniki są mniejsze. Wielkość strzępek subikularnych oraz zarodników należy więc do ważnych cech rozdzielających oba gatunki.
Tomentella stuposa — może być podobna ze względu na stosunkowo duże, kulistawe zarodniki oraz ogólny wygląd owocnika. Istotną różnicą jest jednak brak silnej inkrustacji strzępek subikularnych oraz brak charakterystycznej cyjanescencji obserwowanej u T. lapida. U T. stuposa opisywane są ponadto krótkie boczne odgałęzienia strzępek oraz charakterystyczne miejscowe rozdęcia.
Tomentella alpina — może wykazywać podobne, subglobozowe zarodniki, jednak jej strzępki subikularne nie są silnie inkrustowane. Gatunek związany jest ponadto przede wszystkim ze środowiskiem alpejskim, co ogranicza jego prawdopodobieństwo w przypadku kolekcji z nizinnych lasów Polski.
Literatura
- Yorou, N. S. & Agerer, R. (2011). Non-rhizomorphic resupinate Thelephorales (Agaricomycetes, Basidiomycota) from Italy.
- Kõljalg, U. (1996). Tomentella (Basidiomycota) and related genera in temperate Eurasia.
- Opracowania europejskich Tomentellaceae i klucze do tomentelloidów, w których Tomentella lapida jest ujmowana w rodzaju Thelephora.
Galeria zdjęć
Lokalizacja: Puszcza Knyszyńska, Czołnowo.
Siedlisko: Las liściasty.
Substrat: Owocniki na dolnej stronie drąga leżącego na ziemi, prawdopodobnie grab, na drewnie pozbawionym kory.